Ökologie, Verbreitung & Naturschutz
Habitatanforderungen, geografische Verbreitung, Verhaltensökologie und Erhaltungszustand von medizinischen Blutegelarten
Der medizinische Blutegel nimmt eine paradoxe Stellung in der Naturschutzbiologie ein: einst so begehrt, dass Frankreich im Jahr 1833 etwa 42 Millionen Exemplare importierte, heute geschützt durch CITES-Anhang II und von der IUCN als potenziell gefährdet eingestuft. Diese Organismen benötigen spezifische Süßwasserlebensräume mit definierter Wasserchemie (im Wasser gelöstes Kalzium von 11 bis 94 mg CaO pro Liter und pH 6.1 bis 9.0; Bennike 1943), regelmäßigen Zugang zu Säugetierwirten, Freiheit von Prädationsdruck und saisonale Temperaturzyklen, die ihr Verhaltensrepertoire steuern. Dieselbe medizinische Nachfrage, die die Populationen im 19. Jahrhundert an den Rand des Aussterbens brachte, finanziert heute Zuchtprogramme, die möglicherweise die beste Überlebenschance für die Art darstellen.
Ökologische Übersicht
Medizinische Blutegel sind frei lebende Ektoparasiten (Stamm Annelida, Unterklasse Hirudinea), die ein eigenständiges aquatisches Leben führen, das von gelegentlichen Blutmahlzeiten an besuchenden Wirbeltieren unterbrochen wird. In der modernen Taxonomie werden drei Arten anerkannt:
| Art | Gebräuchlicher Name | Primäres Verbreitungsgebiet | Wichtige ökologische Merkmale |
|---|---|---|---|
| Hirudo medicinalis L. | Europäischer medizinischer Blutegel | Nord-/Mitteleuropa (UK, Skandinavien, Nordfrankreich, Deutschland, Polen) | Lithophil (bevorzugt felsigen Untergrund); am stärksten eingeschränktes Verbreitungsgebiet; stärkste CITES-Relevanz |
| Hirudo verbana Carena | Südeuropäischer medizinischer Blutegel | Süd-/Südosteuropa (Italien, Balkan, Türkei, Südfrankreich) | Dominant commercial species; historisch misidentified as H. medicinalis; muddy substrate preference |
| Hirudo orientalis Utevsky & Trontelj | Östlicher medizinischer Blutegel | Kaukasus, Iran, Zentralasien, Naher Osten | Aggressiver als die offizinelle Varietät; wärmeadaptiert; ökologisch am wenigsten untersucht |
Die taxonomische Klärung (Siddall et al. 2007) hat weitreichende Folgen: Bis zum frühen 21. Jahrhundert wurden alle drei als H. medicinalis behandelt, und als H. medicinalis vermarktete Blutegel sind tatsächlich H. verbana (Siddall et al. 2007), was regulatorische und Naturschutz-Daten betrifft. Utevsky et al. (2010) schlugen den Status „Near Threatened“ für H. medicinalis, H. verbana und H. orientalis vor.
Zusammenfassung ökologische Nische
Der medizinische Blutegel besetzt eine enge ökologische Nische, die durch fünf wesentliche Bedingungen definiert ist (Lukin 1976): (1) eine große Anzahl von Fröschen im Gewässer und regelmäßige Besuche von Säugetierwirten — Blutegel benötigen Blutmahlzeiten für Wachstum und Fortpflanzung; (2) Abwesenheit einer großen Anzahl von Feinden des Blutegels; (3) ausreichende Erwärmung des Wassers im Frühling und Sommer, um Stoffwechselaktivität und Kokonentwicklung zu unterstützen; (4) geeignete Uferbedingungen für die Kokonablage oberhalb der Wasserlinie; und (5) vergleichsweise geringe Schwankung des Wasserstands, sodass abgelegte Kokons nicht weit vom Wasser entfernt zu liegen kommen. Der Verlust einer einzigen Anforderung macht einen Lebensraum ungeeignet, was die Anfälligkeit der Art für Veränderungen auf Lebensraumebene erklärt.
Lebensraumansprüche
Bevorzugte Lebensräume: flache Sümpfe mit emergenter Vegetation (Schilf, Rohrkolben), Teiche, ruhige Altwässer, Bewässerungsgräben und Reisfelder (Livanov 1940; Lukin 1976; Sawyer 1986). Gemeinsam ist ruhiges, bewachsenes Süßwasser mit Uferzugang.
Wasserchemie
Bennike (1943) erachtete in seiner Studie über dänische Süßwasserblutegel das Vorhandensein von Kalzium im Wasser als notwendig für die Besiedlung durch den Medizinischen Blutegel (von 11 bis 94 mg CaO pro Liter, mit einem pH-Wert von 6.1 bis 9.0).
| Parameter | Bereich | Bedeutung |
|---|---|---|
| Calcium (als CaO) | 11-94 mg CaO pro Liter | Kalzium im Wasser gilt als notwendig für die Besiedlung (Bennike 1943). |
| pH | pH 6.1-9.0 | Besiedlungsbereich nach Bennike (1943). |
| Gelöster Sauerstoff | Moderat bis hoch | Wellenförmige Körperbewegungen zeigen O₂-Mangel an. Krabbelt unter Umständen aus dem Wasser, um Hypoxie zu lindern. |
| Temperatur | Thermophiler Bereich | Benötigt saisonale Erwärmung für Aktivität. Übersteht kein tiefes Gefrieren. Schlecht an extreme Hitze angepasst. |
Substratpräferenzen
H. medicinalis sensu stricto ist lithophil — er bevorzugt felsiges Substrat, hält sich in Ufernähe unter Steinen und untergetauchter Vegetation auf (Lukin 1976). Die Uferzone ist entscheidend für die Fortpflanzung: Kokons werden in feuchtem Boden oberhalb der Wasserlinie abgelegt. Lebensräume ohne geeignetes Ufer (steile Ufer, Betonkanäle, zertrampelte Uferränder) können keine Brutpopulationen unterstützen, unabhängig von der Wasserqualität.
Ideale Lebensraummerkmale
- Stehendes oder langsam fließendes Süßwasser mit schlammigem oder felsigem Boden
- Flache Ufer mit emergenter Vegetation (Schilf, Rohrkolben, Seggen)
- Kalziumreiches, nicht-saures Wasser
- Sanftes Ufergefälle für die Kokonablage
- Regular mammalian visitors (livestock watering points historisch ideal)
- Geringe Räuberdichte, insbesondere Abwesenheit von Pferdeegeln
- Saisonaler Temperaturzyklus: warme Sommer, frostfreie Winter
Ungeeignete Lebensraummerkmale
- Schnell fließendes Wasser (Flüsse, Bäche mit starker Strömung)
- Tiefwasser ohne bewachsene Flachuferzonen
- Kalziumarmes, stark saures Wasser (pH <6,0)
- Biotope mit tiefem Gefrieren
- Austrocknende Gewässer (temporäre Tümpel, saisonale Bäche)
- Steile oder künstliche Ufer ohne feuchten Boden für Kokons
- Verschmutzte Gewässer (landwirtschaftliche Einträge, industrielle Kontaminanten)
- Kein Säugetierzugang (eingezäunte, isolierte Gewässer)
Geografische Verbreitung
Natürliche Populationen sind in der gemäßigten Paläarktis konzentriert, wobei mehrere Hirudo-Arten vorkommen (mindestens sechs sind inzwischen anerkannt; die drei wichtigsten medizinischen Blutegelarten H. medicinalis, H. verbana und H. orientalis nehmen weitgehend allopatrische Areale ein). Die Gattung ist thermophil, aber schlecht an extreme Hitze angepasst; tiefes Gefrieren ist tödlich (Lukin 1976) und beschränkt diese drei Arten auf ein Band von Westeuropa über den Kaukasus bis nach Zentralasien.
Verbreitung nach Art
| Region | Dominante Art | Status | Anmerkungen |
|---|---|---|---|
| Nordeuropa (UK, Skandinavien, N-Deutschland) | H. medicinalis | Selten / gefährdet | Durch Ernten im 19. Jhd. erschöpft; isolierte Reliktpopulationen |
| Südfrankreich, Italien, Balkan | H. verbana | Häufiger | Primary historisch trade source |
| Türkei, Griechenland | H. verbana / H. orientalis | Variabel | Überlappungszone der Arten |
| Kaukasus | H. orientalis | Relativ stabil | Weniger von kommerzieller Ernte betroffen |
| Zentralasien | H. orientalis | Schlecht dokumentiert | Ökologische Daten spärlich |
| Südliches europäisches Russland | H. medicinalis / H. verbana | Erschöpft | Verbreitungsgebiet geschrumpft (Voskresensky 1859) |
| W-Sibirien | H. medicinalis (selten) | Extrem selten | Randpopulationen |
| Ostsibirien, N/NO-Russland | Nicht vorhanden | n. z. | Tiefes Gefrieren schließt Etablierung aus |
Historische Berichte dokumentieren das Sammeln in sibirischen und zentralrussischen Gebieten während des Booms im 19. Jahrhundert (Voskresensky 1859), was auf ein breiteres historisches Verbreitungsgebiet hindeutet. Das völlige Fehlen moderner Nachweise aus diesen Regionen lässt auf eine Schrumpfung durch die Kombination von Übernutzung und Lebensraumverlust schließen.
Taxonomische Verwirrung und Naturschutz-Konsequenzen
Bis die Molekularphylogenetik die Artgrenzen klärte (Siddall et al. 2007; Utevsky et al. 2010), wurden alle drei Arten unter H. medicinalis geführt. CITES-Handelsdaten und Rote-Liste-Bewertungen können keiner einzelnen Art zuverlässig zugeordnet werden. Die kommerziell dominante H. verbana wurde lange als H. medicinalis vermarktet (Siddall et al. 2007); Bewertungen für das echte H. medicinalis sind daher möglicherweise unzuverlässig.
Saisonaler Aktivitätszyklus
Der Jahreszyklus wird durch Temperatur und Photoperiode gesteuert. Vitets Beobachtungen (1809) — das früheste dokumentierte saisonale Profil — stimmen weiterhin mit modernen Befunden überein.
| Saison | Aktivitätsniveau | Fressverhalten | Bissmerkmale | Nachblutung nach Ablösen |
|---|---|---|---|---|
| Frühling | Hoch — Energiedefizit nach Dormanz | Sticht mit erheblicher Kraft und Geschwindigkeit ein; kräftiger Anbiss | Maximale Biss-Kraft; schnelle Inzision | Starke und verlängerte Blutung (maximale SGS-Potenz) |
| Sommer | Höhepunkt — Fortpflanzungssaison | Hohe Aktivität; häufige Wirtssuche | Starker Anbiss; reduziertes Blutvolumen pro Mahlzeit | Moderate Blutung |
| Herbst | Abnehmend — Mast vor Dormanz | Weniger aktiv; langsamerer Anbiss | Schwächerer Biss; bedächtige Bewegungen | Spärliche Blutung; das Blut gerinnt an der Bissstelle rasch |
| Winter | Minimal — Dormanz | Träge; löst sich häufig vor Beendigung der Mahlzeit ab | Schwacher, unvollständiger Schnitt | Minimale Blutung; schnelle Gerinnung |
Dormanzzyklen
Blutegel durchlaufen jährlich zwei Dormanz-Perioden. Im Herbst Winterdormanz (Hibernation): Eingraben in den Untergrund, Reduktion der Stoffwechselrate, Einstellen der Nahrungsaufnahme. In der Sommerdürre Sommerdormanz (Aestivation): Rückzug in feuchten Boden unterhalb der zurückweichenden Wasserlinie, Auftauchen bei steigendem Wasser. Diese duale Strategie passt sich an mediterrane und kontinentale Klimate an, in denen die Wasserverfügbarkeit stark schwankt.
Verhaltensökologie
Das Verhalten wechselt zwischen zwei Zuständen: Wirtssuche (aktiv) und Post-Feeding (ruhend), jeweils mit unterschiedlichen sensorischen Prioritäten.
Phototaxis und Versteckaufsuche
Gesättigte Blutegel zeigen eine negative Phototaxis und ziehen sich unter Steine und Vegetation zurück — wodurch das Prädationsrisiko während der monatelangen Verdauungsphase verringert wird. Hungrige Blutegel verhalten sich gegenteilig: Sie orientieren sich zum sonnenbeschienenen, offenen Wasser, wo Wirte am ehesten eintreten (Lukin 1976). Dieser zustandsabhängige Wechsel gehört zu den dramatischsten Verhaltensänderungen in der Biologie der Wirbellosen.
Wirtssuchverhalten
Die Wirtserkennung erfolgt über mehrere sensorische Modalitäten:
Mechanorezeption
Wasseroberflächenwellen mit geringer Amplitude lösen bei nicht gefütterten Blutegeln Schwimmverhalten aus, und die ausgelöste Fortbewegung ist überwiegend auf die Wellenquelle gerichtet (Young et al. 1981). Über den Körper verteilte Sinneszellen detektieren feinste Druckänderungen in der Wassersäule.
Chemorezeption
Säugetierduft — einschließlich Hautsekreten, Schweißverbindungen und Kohlendioxid — orientiert die Richtungsbewegung. Chemorezeptoren, die im Vordersaugnapf und auf den Lippensegmenten konzentriert sind, leiten den letzten Anflug an den Wirt.
Thermorezeption
Temperaturgradienten, die warmblütige Wirte in kaltem Wasser erzeugen, liefern ein verlässliches Nähesignal. Blutegel orientieren sich zu Wärmequellen und nutzen die Thermo-Sensorik, um optimale Anhefte-Stellen am Wirtskörper zu finden.
Diese drei Modalitäten erzeugen ein hierarchisches Detektionssystem: mechanische Störungen lösen die Suche über große Entfernung aus, chemische Gradienten leiten das Schwimmen über mittlere Entfernung, und die Thermo-Sensorik identifiziert Anhefte-Stellen aus der Nähe — Wirts-Lokalisierung selbst in trübem, bewachsenem Wasser.
Altersabhängige Aggression & Sauerstoffsuche
Juvenile sind durchweg aggressiver als Adulte — Adulte können demgegenüber bis zu 12–18 Monate nach einer einzigen Fütterung fasten. Bei niedrigem gelösten Sauerstoff zeigen Blutegel wellenförmige Körperbewegungen, die den kutanen Gasaustausch erhöhen. Bei schwerer Hypoxie können sie vollständig aus dem Wasser kriechen.
Fortbewegung
Drei unterschiedliche Modi ermöglichen die Nutzung von Mikrohabitaten von Schlickflächen bis zum offenen Wasser:
1. Kriechen
Peristaltische Muskelkontraktion ohne Saugnapfbeteiligung. Längs- und Ringmuskulatur kontrahieren sequenziell und erzeugen Verlängerungs-Kompressions-Zyklen. Wird auf feuchtem Untergrund und bei Überlandbewegung eingesetzt. Langsamster Modus: ~1–3 cm/min.
2. Schrittgang (Inchworm-Gang)
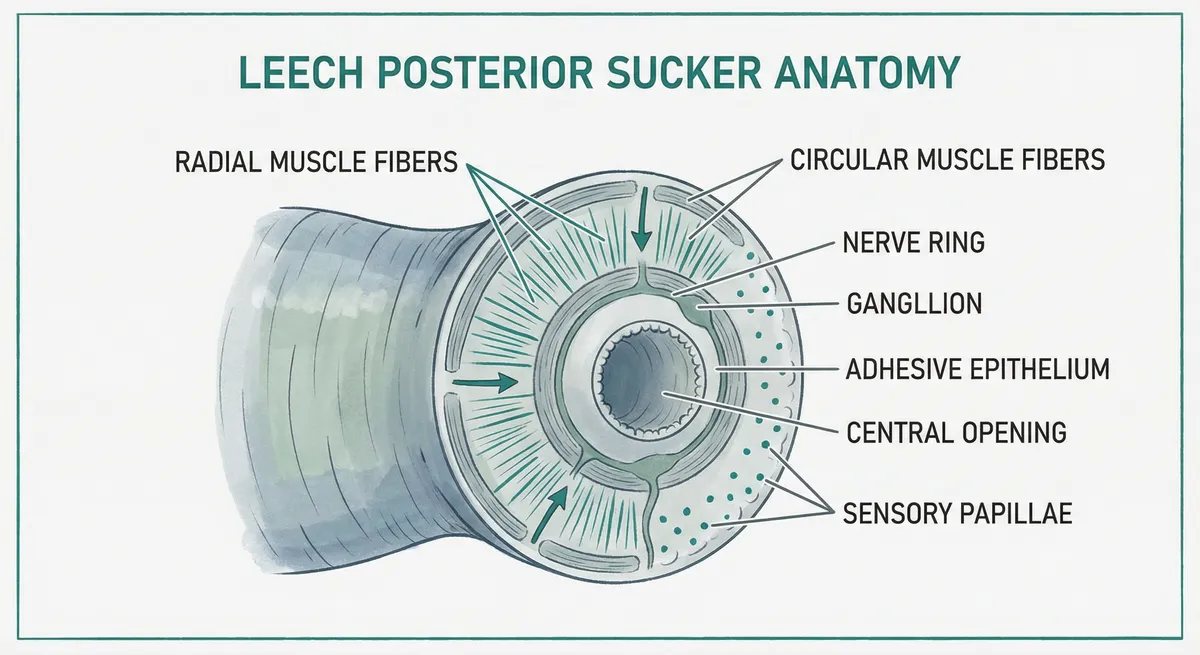
Hintersaugnapf haftet an → Körper streckt sich → Vordersaugnapf tastet und haftet an → Hintersaugnapf löst sich → Körper wölbt sich zu einer Schleife. Primäre Fortbewegungsart auf festen Oberflächen (Felsen, Wirtshaut). Das vordere Tasten schließt eine sensorische Beurteilung ein. Geschwindigkeit: ~5–10 cm/min.
3. Schwimmen
Wellenförmige dorsoventrale Bewegung. Der Körper flacht ab und propagiert sinusförmige Wellen von vorne nach hinten und erzeugt Vortrieb. Beide Saugnäpfe eingezogen. Schnellster Modus: anhaltend bis zu 30 cm/s, in Fluchtschüben höher. Verwendet für Wirtsanflug über lange Strecken und Räuberflucht.
Die neuronale Steuerung dieser Fortbewegungsarten beruht auf eigenständigen mustergenerierenden Schaltkreisen im Bauchmark. Die Übergänge zwischen den Fortbewegungsarten sind diskret, nicht graduell — der Blutegel wechselt die Mustergeneratoren je nach Verfügbarkeit des Untergrunds, Wassertiefe und Motivationszustand (hungrig vs. gesättigt).
Sensorische Ökologie
Obwohl ihnen bildgebende Augen fehlen (nur Ocellen zur Hell-Dunkel-Unterscheidung), erkennen und orten medizinische Blutegel Wirte über eine Entfernung von mehreren Metern hinweg mittels vier integrierter Sinnesmodalitäten.
Mechanorezeption: Young et al. (1981) zeigten, dass ungefütterte Blutegel auf Wasseroberflächenwellen geringer Amplitude (etwa 1 mm) mit Schwimmen reagieren (86-95 % der Tests), wobei die Bewegung meist auf die Wellenquelle gerichtet ist. Segmentale Sensillen („sensillare Bewegungsrezeptoren“) wandeln Oberflächenwellenreize um (Friesen 1981).
Chemorezeption (mittlere Reichweite, 10 cm–1 m): Blutegel orientieren sich an gelösten Säugetiersignalen — CO₂, Ammoniak, Milchsäure, Talgverbindungen. Die vorderen Lippensegmente weisen die höchste Chemorezeptordichte für die feine Gradientenverfolgung auf.
Thermorezeption (kurze Reichweite, <10 cm): Erkennt Gradienten <1 °C in der Umgebung warmblütiger Wirte. Auf der Haut leitet sie zu Stellen mit oberflächlichem Blutfluss — was die bevorzugte Anheftung über Venen und gestauten Bereichen erklärt.
Fotorezeption: Fünf Ocellen-Paare vermitteln zustandsabhängige Phototaxis: Lichtvermeidung bei Sättigung, Lichtanziehung bei Hunger — Positionierung für Wirtsbegegnung.
Multimodales Integrationsmodell
Hierarchisch nach Reichweite: (1) Mechanorezeption löst die Suche aus; (2) Chemorezeption leitet das gerichtete Schwimmen; (3) Thermorezeption lokalisiert Anhefte-Stellen; (4) Kontaktbeurteilung vor dem Biss. Erklärt die Wirts-Lokalisierung in völliger Dunkelheit und trübem Wasser.
Räuber-Beute-Beziehungen
Medizinische Blutegel nehmen eine mittlere trophische Position in Süßwasser-Nahrungsnetzen ein. Die Zusammensetzung der Räubergemeinschaft ist eine der wesentlichen Habitatbedingungen nach Lukin (1976) — Populationen können dort nicht bestehen, wo der Prädationsdruck hoch ist.
Bekannte Räuber
| Räuber | Taxonomische Gruppe | Räuberart | Auswirkung |
|---|---|---|---|
| Pferdeegel (Haemopis sanguisuga) | Hirudinea | Schluckt ganz oder reißt auseinander | Stark — Lebensraum-Ausschluss |
| Schermaus (Arvicola amphibius) | Rodentia | Opportunistische aquatische Nahrungssuche | Moderat |
| Bisamspitzmaus (Desmana moschata) | Insectivora | Bodensuche | Moderate (historisch; desman itself endangered) |
| Tauchkäfer (Dytiscus spp.) | Coleoptera | Larven greifen Juvenile an | Moderat — Juvenil-Rekrutierung |
| Wasserwanzen (Nepidae, Notonectidae) | Hemiptera | Stech-Saugen an Juvenilen | Gering bis moderat |
| Libellenlarven | Odonata | Lauerjäger | Gering — kleine Individuen |
| Wasservögel | Aves | Visuelle Nahrungssuche in flachem Wasser | Variabel |
| Süßwasserschildkröten | Reptilia | Opportunistisch (vermutet) | Unsicher |
Wirtspräferenzen und Angriffserfolg
Blutegel können sich an allen Wirbeltierklassen anheften, zeigen jedoch deutliche Präferenzen. Sie sind besonders geneigt, Frösche anzugreifen (zahlreich in den kleinen Gewässern, in denen der Blutegel lebt; Lukin 1976). Unter den Säugetieren lieferten historisch am Wasser weidende Huftiere die primären Blutmahlzeiten; der Rückgang wildlebender Säugetiere und die Abzäunung des Viehs von Gewässern haben diese Interaktion beseitigt. Bei schnell schwimmenden Fischen sind Blutegel weniger erfolgreich und gegenüber Reptilien weitgehend gleichgültig (schützendes Integument + seltene Habitatüberschneidung).
Das Pferdeegel-Problem
Haemopis sanguisuga ernährt sich nicht von Blut — es ist ein makrophager Räuber, der Wirbellose einschließlich anderer Blutegel verzehrt. Lukin (1976) weist darauf hin, dass es medizinische Blutegel, insbesondere junge, angreifen kann, und warnt davor, es versehentlich in Blutegelzuchtanlagen einzubringen; das Fehlen einer großen Anzahl von Feinden, ohne den Rossegel namentlich zu nennen, gehört zu den Habitatbedingungen, die er aufzählt. Da Fressfeinde, einschließlich des Rossegels, Populationen des medizinischen Blutegels begrenzen, sollte der Prädationsdruck bei der Bewertung von Standorten für Erhaltung oder Wiederansiedlung beurteilt werden.
Verhaltensunterschiede zwischen Arten
Verhaltensunterschiede zwischen den drei Arten:
| Verhaltensmerkmal | H. medicinalis | H. orientalis | H. verbana |
|---|---|---|---|
| Aggressivität | Moderat | Hoch — durchgehend aggressiver | Moderat bis hoch |
| Anhefte-Geschwindigkeit | Moderat (typisch 1–5 min) | Schnell (typisch <1–3 min) | Moderat (typisch 1–5 min) |
| Substratpräferenz | Lithophil (felsig) | Variabel | Schlammiger Boden |
| Temperaturtoleranz | Kühl-gemäßigt | Wärmeadaptiert | Warm-gemäßigt |
| Geografisches Verbreitungsgebiet | Am stärksten eingeschränkt (Nordeuropa) | Kaukasus, Zentralasien | Am weitesten (S/SO-Europa) |
| Kommerzielle Verfügbarkeit | Selten | Moderat (regional) | Dominante kommerzielle Art |
Verhalten wildgefangen vs. zuchtgeboren
Kamenev (2001) dokumentierte, dass in Gefangenschaft gezüchtete Exemplare weniger mobil und weniger aggressiv sind als wildgefangene Individuen, da sie es gewohnt sind, Futter zu erhalten statt darum zu konkurrieren. Die Aggressivität in Gefangenschaft gezüchteter Tiere kann je nach Haltung und Fütterungsbedingungen erheblich schwanken.
Die größere Aggressivität von H. orientalis hat einige Praktiker dazu bewogen, ihn für den klinischen Einsatz zu bevorzugen. Die überwiegende Mehrheit der Blutegel im internationalen Handel ist jedoch H. verbana, was dessen breitere Verbreitung und die etablierte Aquakulturinfrastruktur widerspiegelt.
Schutzstatus
Einer der am umfassendsten geschützten Wirbellosen, gelistet auf internationaler, kontinentaler und nationaler Ebene:
| Rahmen | Status | Implikationen |
|---|---|---|
| CITES Anhang II | Unter Hirudo medicinalis gelistet | Internationaler Handel reguliert; Exportgenehmigungen erforderlich |
| IUCN-Rote Liste | Gering gefährdet (NT) | Globale Population im Rückgang; nähert sich den Kriterien für Vulnerable |
| Europäische Rote Liste | Gelistet (Utevsky et al. 1999) | Erfordert Naturschutzmaßnahmen im gesamten europäischen Verbreitungsgebiet |
| Deutschland | Gefährdet / streng geschützt | Wild collection verboten; habitat protection mandated |
| Frankreich | Geschützte Art | Wildfang verboten |
| Vereinigtes Königreich | Wildlife & Countryside Act 1981 | Art der Anlage 5; geschützt vor Tötung, Verletzung, Handel |
| Skandinavien | Verschiedene Schutzlisten | Extrem spärliche nordische Populationen |
| Russland | Regionale Rote Listen | Mehrere regionale Rote Datenbücher |
Eine entscheidende Einschränkung: der CITES-Eintrag umfasst „Hirudo medicinalis„, ohne die drei heute anerkannten Arten zu unterscheiden. Ob H. verbana und H. orientalis automatisch erfasst werden, ist rechtlich unklar und erzeugt Vollzugslücken. Naturschutzbiologen befürworten eine Listung auf Artniveau.
Historischer Populationsrückgang
Auf dem Höhepunkt der „Blutegelmanie“ (1830er–1840er Jahre) verbrauchte die europäische Medizin jährlich Hunderte von Millionen, was auf dem gesamten Kontinent zu katastrophalen Bestandsrückgängen führte.
Ausmaß der Ausbeutung
| Land | Zeitraum | Volumen | Quelle |
|---|---|---|---|
| Frankreich | 1830er | etwa 40–42 Mio. im Jahr 1833 importiert | Handelsaufzeichnungen |
| Russland | 1840er–1850er | 30+ Mio. jährlich nach Westeuropa exportiert | Voskresensky 1859 |
| Ungarn | 1830er–1840er | Großer Exporteur nach Frankreich, Deutschland, Großbritannien | Kommerzielle Aufzeichnungen |
| Osmanisches Reich | 1820er–1860er | Zehnmillionen aus anatolischen Feuchtgebieten | Kommerzielle Aufzeichnungen |
| Vereinigtes Königreich | 1830er | 7–9 Mio./Jahr importiert (Londoner Krankenhäuser) | Krankenhausakten |
Unter Broussais (1772–1838) verbrauchte allein Paris 5–6 Millionen/Jahr. Als die inländischen Vorräte zusammenbrachen, bezog Frankreich aus Russland, Ungarn, der Türkei und dem Balkan. Als die Theorien an Beliebtheit verloren, schrumpfte der Handel — doch der ökologische Schaden war angerichtet. Populationen um Größenordnungen reduziert; Voskresenskys (1859) sibirische Populationen sind nicht mehr nachweisbar.
Die Blutegelsammler
Berufsmäßige „Blutegelsammler“ wateten barfuß in Sümpfe und benutzten ihre Beine als Köder. Gefährliche, schlecht bezahlte Arbeit — chronischer Blutverlust und Infektionen. Wordsworth verewigte den Beruf 1802 in seinem Gedicht „Resolution and Independence“ und beschrieb einen älteren Sammler, der bemerkte, dass Blutegel knapp wurden — ein früher Zeuge des Populationsrückgangs.
Aktuelle Bedrohungen
Moderne Bedrohungen sind primär habitatbasiert. Selbst Populationen, die die Erntezeit überlebt haben, stehen unter sich häufenden Belastungen:
Lebensraumzerstörung
- Trockenlegung von Feuchtgebieten: Landwirtschaftliche Umnutzung hat weite Sumpf-/Teich-Lebensräume zerstört. Europa hat etwa 70 % seiner historischen Feuchtgebiete verloren (rund 78,4 Millionen Hektar), und mehrere Länder, darunter Irland, Litauen, Tschechien, Ungarn, Italien, Finnland und Deutschland, haben über 75 % verloren.
- Gewässerlauf-Veränderung: Begradigung, Vertiefung und Betonauskleidung beseitigen flache bewachsene Ufer.
- Uferentwicklung: Urbanisierung und Uferverbauung zerstören Ablagestellen für Kokons.
- Flächen-Fragmentierung: Straßen und landwirtschaftliche Intensivierung isolieren verbleibende Feuchtgebiets-Fragmente und verhindern genetischen Austausch.
Verschmutzung & Wasserqualität
- Landwirtschaftliche Einträge: Pestizide und düngerinduzierte Eutrophierung führen zu Sauerstoffmangel.
- Industrielle Kontaminanten: Schwermetalle reichern sich über aufgenommenes Blut an, mit unbekannten Populations-Effekten.
- Pharmazeutische Rückstände: Antikoagulantien und endokrine Disruptoren können Physiologie und Reproduktion beeinflussen.
- Versauerung: Saurer Regen versauert Gewässer; Bennike (1943) gab für den medizinischen Blutegel einen Besiedelungsbereich von pH 6,1 bis 9,0 und 11 bis 94 mg CaO pro Liter an.
Klimawandel
- Veränderte Niederschläge: Zunehmende Dürre kann permanente Habitate in saisonale verwandeln.
- Temperatur-Extreme: Hitze-Ereignisse erhöhen die Wassertemperatur über die Toleranzgrenze und verringern den gelösten O₂.
- Phänologische Diskrepanz: Verschiebung der Zeitpunkte kann die Blutegel-Aktivität von der Wirtsverfügbarkeit entkoppeln.
- Verbreitungsverschiebung: Eine nördliche Ausbreitung ist theoretisch möglich, doch die Fragmentierung verhindert die Besiedlung neu geeigneter Gebiete.
Verlust der Säugetierwirte
- Viehbewirtschaftung: Moderne Praktiken zäunen das Vieh von Gewässern ab und beseitigen so die primäre Quelle für Blutmahlzeiten.
- Rückgang von Wildsäugetieren: Weniger Großsäuger (Wildschwein, Reh), die Feuchtgebiete aufsuchen, verringern die Nahrungsaufnahme.
- Veterinärmedizinische Antiparasitika: Ivermectin im Viehblut kann für Blutegel toxisch sein.
- Kritischer Schwellenwert: Ohne regelmäßige Blutmahlzeiten können Populationen ihre Fortpflanzung nicht aufrechterhalten — die unmittelbarste, aber am wenigsten sichtbare Bedrohung.
Das Naturschutz-Paradox
Dieselbe medizinische Nachfrage, die H. medicinalis an den Rand des Aussterbens trieb, finanziert nun die Zuchtprogramme, die ihr Überleben sichern. Das Absammeln aus der Wildnis ist weder machbar noch ratsam; die kommerzielle Aquakultur ist die einzige tragfähige Lieferkette.
Das Paradox in drei Akten
Akt 1 — Ausbeutung (1750–1860): Die Aderlass-Doktrin von Broussais treibt den Verbrauch auf Hunderte von Millionen jährlich. Wildpopulationen kollabieren. Frankreich importiert 40 Mio.+/Jahr; Russland und der Balkan werden ausgebeutet.
Akt 2 — Vernachlässigung (1860–1970): Die Nachfrage stürzt ab, aber die Populationen erholen sich nicht — Lebensräume werden entwässert, verschmutzt, fragmentiert. Kein wirtschaftlicher Anreiz für Naturschutz.
Akt 3 — Wiedergutmachung (1970–heute): Die Mikrochirurgie entdeckt den Blutegel wieder. FDA-Freigabe (2004). Der Markt, der die Art fast vernichtet hätte, finanziert ihre Vermehrung.
Die politische Konsequenz: Nachhaltige Nutzung kann Naturschutz sein. CITES Appendix II erkennt an, dass ein ökonomischer Wert, sachgerecht bewirtschaftet, die Erhaltung von Arten fördert. Die Herausforderung besteht darin, sicherzustellen, dass die Aquakultur den Druck auf die Wildbestände tatsächlich verringert, statt wildgefangene Exemplare in den legalen Markt einzuschleusen.
Naturschutzprogramme
Naturschutz operiert auf drei Ebenen: in-situ-Lebensraumschutz, ex-situ-Zucht/Wiederansiedlung und regulatorische Durchsetzung.
Lebensraumschutz und -wiederherstellung
- Wiederherstellung von Feuchtgebieten: Die Rückführung entwässerter Feuchtgebiete in ihren natürlichen Wasserhaushalt schafft Lebensraum und verbindet zerstückelte Habitate wieder miteinander. Die EU-Wasserrahmenrichtlinie und die FFH-Richtlinie bieten Regulierungsrahmen, die den Blutegelpopulationen indirekt zugutekommen.
- Pufferzonen: Unbebaute Uferstreifen entlang von Gewässern schützen die Ablagestellen der Kokons am Ufer und verringern den landwirtschaftlichen Abfluss.
- Vieh-Tränkstellen-Zugang: Die kontrollierte Wiederherstellung des Viehzugangs zu natürlichen Gewässern stellt die entscheidende Quelle der Blutmahlzeit von Säugetieren wieder her.
- Räubermanagement: Die Überwachung der Pferdeegeldichte in Schutzgebieten verbessert die Lebensraumeignung.
Zucht in Gefangenschaft und Wiederansiedlung
Aquakulturanlagen in Russland, der Türkei und Frankreich unterhalten große Populationen in Gefangenschaft. Das russische Biofabrik-Modell bewahrt genetische Vielfalt, die in den Wildpopulationen verloren gegangen ist. Wiederansiedlungsversuche hatten gemischte Ergebnisse:
Herausforderungen der Wiederansiedlung
- Verhaltensdämpfung bei zuchtgeborenen Individuen (Kamenev 2001)
- Genetische Herkunft — Anpassung des Auswilderungsbestands an den lokalen Genotyp
- Lebensraum-Eignungsbeurteilung (alle vier Lukin-Kriterien müssen erfüllt sein)
- Pferdeegel-Präsenz an potenziellen Auswilderungsstandorten
- Langzeitüberwachung wiederangesiedelter Populationen
- Krankheits- und Parasitenscreening des Auswilderungsbestands
Erfolgsfaktoren
- Gründliche Lebensraum-Bewertung vor der Auswilderung gegen alle bekannten Anforderungen
- Genetisch geeignete Quellpopulationen (bestätigt durch molekulare Analyse)
- Ausreichende Auswilderungszahlen für eine überlebensfähige Brutkolonie
- Bestätigter Zugang zu Säugetierwirten am Auswilderungsstandort
- Abwesenheit oder Management von Pferdeegel-Populationen
- Langfristige (>10 Jahre) Verpflichtung zur Populationsüberwachung
Forschungs- und Überwachungsbedarf
Die Bestandsüberwachung ist für den größten Teil des Verbreitungsgebiets unzureichend. Die verborgene Lebensweise des Blutegels erschwert die Erfassung — seine Anwesenheit ist möglicherweise nur während kurzer Phasen der Wirtssuche erkennbar. Die Beprobung von Umwelt-DNA (eDNA) hat sich als vielversprechendes, nicht-invasives Instrument erwiesen, das die Anwesenheit von Blutegeln aus Wasserproben ohne direkte Beobachtung nachweist.
Die Rolle der kommerziellen Aquakultur im Naturschutz
Aquakulturanlagen unterhalten die größten Einzelpopulationen medizinischer Blutegel weltweit, bewahren die genetische Vielfalt und liefern Bestände für die Wiederansiedlung. Der ökonomische Wert schafft einen finanziellen Anreiz zur Erhaltung, den kein reines Naturschutzprogramm erreichen könnte. Allerdings kann künstlicher Selektionsdruck (Fügsamkeit, verringerte Aggressivität, Toleranz gegenüber hoher Besatzdichte) den Erhaltungswert mindern. Die optimale Strategie: sowohl kommerzielle Populationen als auch separate, auf genetische Vielfalt und Wildtyp-Verhalten ausgerichtete Zuchtlinien für den Naturschutz zu unterhalten.
Evidenz-Zusammenfassung
Wichtige Studien zur Blutegel-Ökologie und zum Naturschutz. Die Literatur ist überwiegend beobachtend und spiegelt die Schwierigkeit kontrollierter Experimente an geschützten Arten wider.
| Studie | Design | Population (n=) | Intervention | Primäres Outcome | Ergebnis |
|---|---|---|---|---|---|
| Sawyer RT 1986 | Monografie / umfassende Übersicht | Alle bekannten Blutegel-Arten (Hirudinea) (n=n. b.) | Systematische Übersicht zu Blutegel-Biologie, -Ökologie und -Taxonomie | Lebensraumpräferenzen, Verbreitung, ökologische Anforderungen | Maßgebliche Referenz für Süßwasser-Habitatanforderungen, Substratpräferenzen und globale Verbreitung Leech Biology and Behaviour (3 Bde.). Grundlagenwerk |
| Lukin EI 1976 | Monografie / systematische Übersichtsarbeit | Blutegelfauna der Sowjetunion und angrenzender Gebiete (n=n. b.) | Erhebung von Verbreitung, Lebensraumansprüchen und ökologischen Beziehungen | Geografisches Verbreitungsgebiet, Wirtsassoziationen, Räuber-Beute-Dynamik | Vier wesentliche Voraussetzungen: Besuche durch Säugetierwirte, Abwesenheit von Fressfeinden, ausreichende Erwärmung, geeignetes Ufer für die Kokons. Südliche/südöstliche Verbreitung bestätigt. Wichtige russischsprachige ökologische Referenz |
| Bennike SAB 1943 | Feldstudie / Beobachtung | H. medicinalis in dänischen Süßwasserhabitaten (n=n. b.) | Wasserchemie-Analyse über Habitate mit/ohne Blutegelpopulationen | Chemische Parameter, die mit der Blutegelpräsenz korrelieren | Kalzium im Wasser als notwendig für die Besiedelung durch den medizinischen Blutegel erachtet: 11-94 mg CaO pro Liter, pH 6,1-9,0 (nach Baskova & Isakhanyan 2004). Dänische Monografie zur Ökologie von Süßwasser-Blutegeln (Folia Limnologica Scandinavica 2, 1-109) |
| Livanov NA 1940 | Kapitel in einem Zoologie-Lehrbuch (Klasse Hirudinea) | Blutegel (Klasse Hirudinea), allgemeine zoologische Abhandlung (n=n. b.) | Beschreibende Abhandlung zu Morphologie, Ökologie und Taxonomie der Blutegel | Beschreibung der Ökologie, Lebensweise und des Verhaltens von Blutegeln | Wird zusammen mit anderen Autoren als Quelle zur Ökologie, Lebensweise und zum Verhalten des Medizinischen Blutegels zitiert Livanov NA. Klasse Hirudinea. In: Handbuch der Zoologie, Bd. II. Moskau-Leningrad, 1940, S. 205-257 |
| Vitet JP 1809 | Klinische Beobachtung / Naturgeschichte | Wilde und in Gefangenschaft gehaltene medizinische Blutegel im Verlauf des Jahreszyklus (n=n. b.) | Systematische Beobachtung von Nahrungsaufnahme, Bisskraft und Blutung über Jahreszeiten | Saisonales Aktivitätsprofil | Frühling: maximale Kraft, verlängerte Blutung. Sommer: hohe Aktivität, reduziertes Volumen. Herbst: reduzierte Aktivität, schnelle Gerinnung. Winter: träge, vorzeitiges Ablösen. Früheste systematische saisonale Dokumentation. Wird in der modernen Praxis noch zitiert |
| Young JO et al. 1981 | Labor- / Verhaltensexperiment | H. medicinalis und verwandte Arten (n=n. b.) | Kontrollierte Wasserstörung und chemische Stimulusexperimente | Sensorische Antwortmuster und Wirtserkennungsmechanismen | Akut empfindlich gegenüber Wasserbewegungen; Oberflächenwellen ziehen aus der Ferne an. Chemische Gradienten orientieren die Richtung. Experimentelle Grundlage für Blutegel-Sensorik-Ökologie |
| Kamenev OYu 2001 | Vergleichende Verhaltensstudie | Wildgefangene vs. in Gefangenschaft gezüchtete H. medicinalis und H. orientalis (n=n. b.) | Standardisierte Bewertung von Aggressivität und Fressverhalten | Effekte von Art und Zuchtbedingungen auf das Verhalten | H. orientalis ist aggressiver als H. medicinalis. In Gefangenschaft gezüchtete Tiere sind weniger mobil/aggressiv als wildgefangene. Die Aggressivität schwankt mit den Haltungsbedingungen. Artenauswahl und Nüchternheitsprotokolle beeinflussen die therapeutische Wirksamkeit |
| Utevsky SY et al. 2010 | Biogeografische Verbreitungs- und Schutzstatus-Studie | Vier westpaläarktische Hirudo-Arten (H. medicinalis, H. verbana, H. orientalis, H. troctina) (n=n. b.) | Kartierung neuerer Nachweise und neuer Expeditionsdaten (Ukraine, Russland, Aserbaidschan, Kasachstan, Usbekistan, Westbalkan); Prüfung ökologischer, anthropogener und historischer Hypothesen für die aktuellen Verbreitungsgebiete | Artverbreitung und Schutzstatus | Die ökologische Hypothese erhielt die höchste Unterstützung; der anthropogene Einfluss war minimal, und es wurden keine historischen Refugien oder Kolonisierungsmuster festgestellt. Für H. medicinalis, H. verbana und H. orientalis wird die globale IUCN-Kategorie Near Threatened vorgeschlagen; H. troctina: Data Deficient. Verbreitung und Status unter der Vier-Arten-Taxonomie neu bewertet |
| Trontelj P & Utevsky SY 2012 | Systematische Übersichtsarbeit / molekulare Phylogenetik | Hirudo-Populationen aus Europa, Kleinasien, dem Kaukasus und Zentralasien (3 Arten) (n=n. b.) | Multi-Locus-Molekularanalyse und morphologische Beurteilung | Artabgrenzung und Revision des Schutzstatus | Drei eigenständige Arten bestätigt. H. medicinalis: auf Nordeuropa beschränkt. H. verbana: süd-/südosteuropäisch. H. orientalis: Kaukasus/Naher Osten. Auflösung auf Artniveau entscheidend für genaue IUCN-Bewertungen |
| Voskresensky SM 1859 | Historische Erhebung / Verwaltungsakten | Kommerzielle Blutegel-Ernte im gesamten Russischen Reich (n=n. b.) | Dokumentation von Erntemengen, Handelsrouten, Populationsauswirkungen | Historische Ausbeutungsintensität und Beleg für den Rückgang | Massive Ernte in sibirischen und zentralrussischen Gebieten während des Booms im 19. Jahrhundert. Die Populationen schrumpften gegenüber dem historischen Verbreitungsgebiet. Primäre historische Quelle zum russischen Blutegelhandel |
Evidenzlücken & Forschungsschwerpunkte
Erhebliche Wissenslücken bestehen weiterhin. Klimawandel, Lebensraumverlust und die erneut aufgekommene medizinische Nachfrage machen ihre Schließung dringlich.
Populationsbiologie
- Keine zuverlässigen globalen Populationsschätzungen für eine der Arten
- Effektive Populationsgrößen, Genfluss und Inzucht sind für die meisten Wildpopulationen unbekannt
- Schwellenwerte für mindestens überlebensfähige Populationen nicht etabliert
- Reproduktionsbiologie in freier Wildbahn (Gelegegröße, Überleben der Jungtiere) kaum quantifiziert
- eDNA-Überwachungsprotokolle bedürfen der Standardisierung
Ökologische Anforderungen
- Wasserchemie jenseits von Bennike (1943) erfordert eine moderne Aktualisierung
- Kokonablage und Juvenil-Habitatmerkmale schlecht charakterisiert
- Wirtsdichte-Schwellenwerte für die Populationsfähigkeit unbekannt
- Effekte der Räubergemeinschaft erfordern quantitative Modellierung
- Beiträge des Mikrobioms zur Umweltanpassung unerforscht
Klimawandel-Verwundbarkeit
- Thermische Toleranzgrenzen nicht präzise gemessen
- Klima-Hüllkurven-Modelle für Verbreitungsverschiebungen fehlen
- Aestivations-Überlebensgrenzen unbekannt
- Klima × Stressor-Interaktionen nicht modelliert
- Potenzial für assistierte Migration unbeurteilt
Naturschutzpraxis
- Erfolgsraten der Wiederansiedlung schlecht dokumentiert
- Fitness gezüchteter vs. wildgefangener Tiere für die Auswilderung nicht quantifiziert
- Wirksamkeit der CITES-Durchsetzung nicht bewertet
- Bewertungen auf Artniveau erforderlich für H. verbana und H. orientalis
- Bewertung der Ökosystemleistungen würde Naturschutzargumente stärken
Die Bearbeitung dieser Prioritäten erfordert die Zusammenarbeit über Zoologie, Naturschutzbiologie, molekulare Ökologie und Aquakulturwissenschaft hinweg. ASH unterstützt evidenzbasierten Naturschutz als Grundlage für eine nachhaltige Praxis der Hirudotherapie.
Verwandte Ressourcen
Blutegel-Biologie-Hub
Überblick über Biologie, Anatomie und Physiologie des medizinischen Blutegels.
Speicheldrüsensekret
Vollständiger molekularer Katalog der bioaktiven Verbindungen des SGS.
Klinische Protokolle
Evidenzbasierte Behandlungsprotokolle für die Hirudotherapie.
Sicherheitsprotokolle
Infektionsprävention, Überwachung und Kontraindikationen.
Antimikrobielle Eigenschaften
Bakterizide SGS-Mechanismen und die Aeromonas-Symbiose.
Wissenschafts-Hub
Forschungsfeld und molekulare Pharmakologie.
Research Roadmap
Open conservation-biology research questions and 2025-2026 priorities.