Speicheldrüsensekret (SGS)
Molekulare Zusammensetzung & Funktionelle Architektur
In einfacher Sprache
Medizinische Blutegel produzieren in ihrem Speichel einen komplexen Cocktail aus mehr als 100 bioaktiven Substanzen. Diese Substanzen verhindern Blutgerinnung, reduzieren Entzündungen, bekämpfen Bakterien und helfen, Schmerzen zu lindern — alles gleichzeitig über einen einzigen Biss verabreicht. Kein pharmazeutisches Medikament kann diesen Multi-Target-Ansatz replizieren. Drei von der FDA zugelassene Medikamente wurden aus einer dieser Verbindungen entwickelt: Hirudin.
Hundreds of salivary proteins catalogued (Babenko et al. 2020, expanded by Manuvera et al. 2025) — only a fraction underwrites clinical indications. See the Coverage Map for what is and isn't studied, the Research Roadmap, and PMID Audit Status for ASH's citation-integrity record.
Die Speicheldrüsensekretion (SGS) von Hirudo medicinalis ist die molekulare Grundlage der Hirudotherapie. Die Koevolution mit vertebratilen Hämostasesystemen hat eine Sekretion hervorgebracht, die mehr als 100 identifizierte bioaktive Moleküle enthält — mit Genom-Assemblies und integrierter transkriptomisch-proteomischer Charakterisierung (Kvist et al., 2020; Babenko et al., 2020), die ein großes Repertoire an Speichelproteinen aufdecken, das durch Entdeckungen bis 2025 weiter erweitert wurde, einschließlich eines neuartigen cysteinreichen Antikoagulans (CRA; Manuvera et al., Biomolecules 2025), des antimikrobiellen Peptids Hirunipin-2 aus H. nipponia (Advanced Science, 2025), und drei neuartiger AMPs aus H. medicinalis (Serebrennikova et al., IJMS 2025). Charakterisierte bioaktive Proteine umfassen mehrere funktionelle Kategorien: analgetisch/antiinflammatorisch, Extrazellulatrixabbau, Thrombozytenhemmung, Antikoagulation, antimikrobiell und andere. Die SGS-Zusammensetzung umfasst direkte Thrombin-Inhibitoren, Faktor-Xa-Inhibitoren, Thrombozytenadhäsions- und -aggregationshemmer, thrombolytische Enzyme, Spreading-Faktoren, antimikrobiellen Peptide, Protease-Inhibitoren, die die Koagulations-/Fibrinolyse-/Komplement-/Entzündungskaskaden umfassen, und ein vielfältiges Array von Lipidmediatoren, Ionenmodulatoren und neurotrophen Faktoren. Von Hirudin abgeleitete Antikoagulanzien — die rekombinanten Hirudine Lepirudin und Desirudin sowie das synthetische, auf Hirudin basierende Peptid Bivalirudin — führen ihre molekularen Ursprünge auf diese Sekretion zurück; Dabigatran nicht (es wurde aus dem synthetischen Inhibitor NAPAP entwickelt).
Historische Entdeckung
Die wissenschaftliche Erforschung des SGS umspannt 141 Jahre, von Haycrafts erster Beobachtung, dass das Blutegelsekret die Blutgerinnung verhindert, bis hin zu modernen Multi-Omics-Studien, die 189 Proteine im Speicheldrüsensekret von H. medicinalis identifiziert haben.
| Jahr | Investigator | Milestone | Significance |
|---|---|---|---|
| 1884 | Haycraft (Edinburgh) | Entdeckung des gerinnungshemmenden Sekrets | Erster Nachweis, dass das Blutegel-SGS ein „gegen das Ferment des Blutes gerichtetes Ferment“ enthält; identifizierte einzellige Drüsen im vorderen Saugnapf |
| 1937 | Claude | Histaminähnliche vasodilatatorische Aktivität | Zeigte, dass Blutegelextrakte eine der Wirkung von Histamin analoge Gefäßerweiterung hervorrufen und so den Blutfluss an der Bissstelle steigern |
| 1955 | Markwardt (Erfurt) | Isolierung von reinem Hirudin | Erste Aufreinigung aus Blutegelkopfextrakten; etablierte den thrombinspezifischen Mechanismus; benannte die Verbindung |
| 1969 | Fritz et al. | Bdelline A & B isoliert | Erste Proteasehemmer aus Blutegeln — Hemmung von Trypsin und Plasmin |
| 1977 | Seemuller et al. | Eglin b/c entdeckt | Potente Hemmstoffe der neutrophilen Elastase und des Cathepsin G — Grundlage für das Verständnis der entzündungshemmenden Wirkung |
| 1984–91 | Baskova & Nikonov | SGS-Gewinnungsmethode; Entdeckung der Destabilase | Salzinduzierte Emesis-Methode (patentiert 1994); Entdeckung der Destabilase-Isopeptidase; Dokumentation jahreszeitlicher Schwankungen |
| 1987 | Rigbi et al. (Jerusalem) | Phagostimulationsmethode | Argininbasierter Blutersatz zur Gewinnung von SGS; identifizierte eglinartige Aktivität und Hemmung von Faktor Xa |
| 1990–91 | Seymour; Munro | Charakterisierung von Decorsin und Calin | GP-IIb/IIIa-Antagonist (Decorsin) und Hemmstoff der Kollagenadhäsion (Calin) — Vervollständigung des thrombozytenhemmenden Bildes |
| 1994 | Sommerhoff; Sollner | LDTI und Hirustasin | Hemmstoffe vom Kazal-Typ gegen Mastzelltryptase und Gewebekallikrein — Erweiterung des entzündungshemmenden Profils |
| 2000 | Zavalova et al. | Duale Funktion von Destabilase bestätigt | Intrinsische lysozymähnliche (antibakterielle) Aktivität wurde für Destabilase, die 12,3-kDa-Isopeptidase, gezeigt; ob beide Aktivitäten zu ein und demselben Protein gehören, wurde 2000 offengelassen und später durch rekombinantes Destabilase-Lysozym gestützt (Kurdyumov et al., 2015) |
| 2001 | Baskova et al. | SGS-Gewinnung im kontinuierlichen Fluss | Kontaminationsfreie Methode; offenbarte zeitliche Variation — die potentesten Peptide werden in den ersten Minuten der Nahrungsaufnahme freigesetzt |
| 2019 | Liu et al. | Integrierte Proteomik-Transkriptomik | Ein umfangreiches Repertoire an Speichelproteinen und bioaktiven Transkripten – weit über die klassische Biochemie hinausreichend |
| 2020 | Kvist; Babenko & Baskova | Zwei Genomassemblierungen | Entwurf des Genoms; mehrere Antikoagulations- und antihämostatische Proteine; identifiziert: Speichel-Homologe von M12/M13 Proteasen, CRISP, Cystatinen und Ficolinen (Cystatin nur im Proteom von H. verbana) |
| 2022 | Lukas et al. | Tandem-Hirudin entdeckt | Erstes oligomeres Mitglied der Hirudin-Superfamilie — zwei globuläre Domänen, keine Thrombinhemmung, was auf funktionelle Diversifizierung hindeutet |
| 2025 | Manuvera et al. | Neues cysteinreiches antikoagulantes Protein (CRA) | Neues Antikoagulans identifiziert und in E. coli rekombinant produziert; hohe Aktivität in aPTT-, PT- und TT-Assays; C-terminales Motiv funktionell kritisch — erweitert das bekannte Speichelprotein-Repertoire (Biomolecules 15(12):1633) |
| 2025 | Chosun Univ. / KBSI (Korea) | Hirunipin-2 — neuartiges antimikrobielles Peptid | Aus den Speicheldrüsen von H. nipponia; wirksam gegen multiresistente Bakterien einschließlich Acinetobacter; Anti-Biofilm-Aktivität; entdeckt mittels 3D-Holotomographie-Screening + KI-gestützter Bioinformatik (Advanced Science, Wiley) |
| 2025 | Serebrennikova et al. | Drei neue AMPs: LBrHM1, NrlHM1, NrlHM2 | Aus dem Genom von H. medicinalis identifiziert mittels heterologer Expression in E. coli; erweitert das Repertoire antimikrobieller Peptide (IJMS 26(14):6903) |
| 2025 | Korea (H. nipponia) | Biogenese extrazellulärer Vesikel in Speicheldrüsenzellen | Erste Studie zur EV-Biogenese in Speicheldrüsen des Blutegels; EVs könnten als natürliche bioaktive Träger für aus Blutegeln gewonnene Verbindungen dienen — Potenzial für den Wirkstofftransport (ScienceDirect) |
| 2025 | bioRxiv-Preprint | In Mikroalgen produziertes funktionelles Hirudin | Erstmals rekombinantes Hirudin in Chlamydomonas reinhardtii (GRAS-Mikroalge) mit korrekter Tyrosin-Sulfatierung — überwindet die Grenzen von E. coli und Hefe für eine skalierbare Produktion |
Haycraft's Original Observation (1884)
„Es ist möglich, dass Blutegel einen Saft absondern, der ein Ferment enthält, das dem Ferment des Blutes entgegenwirkt und die Blutgerinnung verhindert. Dieser Saft tritt in ausreichender Menge rund um die Ränder der vom Blutegel verursachten Wunde aus, um für eine gewisse Zeit die Gerinnung des austretenden Blutes zu verhindern.“
Haycraft bemerkte langgestreckte Epithelzellen, die zwischen den Muskelfasern verlaufen (kleine Ansammlungen davon im Saugnapf waren von Ray Lankester als einzellige Drüsen angesehen worden), und stellte fest, dass „wenn die Haut, die den Saugnapf auskleidet, entfernt wird, sie sich als wirksam bei der Verhinderung der Gerinnung erweist. Nicht in geringerem Maße jedoch ist der vordere Teil eines Blutegels, von dem die Haut des Saugnapfs entfernt wurde.“ Diese Beobachtung aus dem Jahr 1884 leitete ein wissenschaftliches Streben ein, das mehr als 140 Jahre später mit genomischen und KI-gestützten Ansätzen fortgeführt wird.
Methoden zur SGS-Gewinnung
Die Gewinnung von nativem SGS ist technisch anspruchsvoll. Die drei etablierten Methoden liefern Sekrete unterschiedlicher Reinheit und Zusammensetzung, mit direkten Auswirkungen auf die Reproduzierbarkeit der Forschung und die pharmazeutische Standardisierung.
| Methode | Developer | Principle | Purity | Yield | Limitation |
|---|---|---|---|---|---|
| Salzinduzierte Emesis | Baskova, 1994 (patent) | Konzentrierte Kochsalzlösung erregt serotoninreiche Neuronen → Brechreflex → SGS wird aus dem nüchternen Blutegel ausgestoßen | Hoch (nativ, unkontaminiert) | Geringes Volumen pro Blutegel | Erfordert nüchterne Blutegel; variable Ausbeute |
| Phagostimulation | Rigbi et al., 1987 | 0.01 M Arginin-Blutsubstitut → Stimulation der Chemorezeptoren der Oberlippe → Nahrungsaufnahme + SGS-Ausstoß | Niedrig (Darmkontamination) | Höheres Volumen (A₂₈₀ = 0.197) | Enthält intestinale Proteasen; kein echtes SGS |
| Continuous-flow | Baskova et al., 2001 | Modifiziertes Rigbi-Verfahren — Kochsalzlösung wird während der Fütterung kontinuierlich gerührt und erneuert → verhindert das Verschlucken der mit SGS angereicherten Lösung | Hoch (keine Darmkontamination) | Gutes Volumen, sequenzielle Fraktionen | Technische Komplexität des Aufbaus |
Zeitliche Variation während der Nahrungsaufnahme
Die kontinuierliche Durchflussmethode (Baskova et al., 2001) ergab einen entscheidenden Befund: Die SGS-Zusammensetzung ändert sich im Verlauf des Fütterungsprozesses. Die sequenzielle UV-Spektralanalyse zeigte, dass sich charakteristische Absorptionspeaks mit fortschreitender Fütterung zu längeren Wellenlängen verschieben. Während der ersten Minuten enthält die Sekretion die überwiegende Masse an Peptiden und Proteinen, die im kurzwelligen Bereich absorbieren. In den nachfolgenden Fraktionen verbleiben nur Spuren.
Extrakte ganzer Egel (WLE) vs. natives SGS
Viele Untersucher haben Extrakte der Kopfregion anstelle von nativem SGS verwendet, darunter Markwardts ursprüngliche Hirudin-Isolierung (1955). WLE enthält Proteaseinhibitoren, die nicht im SGS, sondern im Verdauungstrakt konzentriert sind, insbesondere im Vorderdarm (Roters & Zebe, 1992), in den Blutlakunen, den Fortpflanzungsorganen, den Nephridien und im Schleim — was es zu einer umfassenderen, aber weniger spezifischen Sammlung macht als SGS allein. WLE bildet die Grundlage für die pharmazeutische Formulierung Piyavit (Kapitel 18–19). In Extrakten aus dem Egelrumpf wurde ein 5-kDa-Protein identifiziert, das als Pseudohirudin bezeichnet wurde, dem jedoch die Antithrombin-Aktivität fehlt (Baskova et al., 1980).
Vollständiger Molekularkatalog
Die folgende Tabelle stellt alle charakterisierten SGS-Komponenten mit Molekulargewichten (reife prozessierte Formen), biologischen Zielstrukturen, Wirkmechanismen, klinischer Bedeutung, Primärreferenzen und dem Stand der pharmazeutischen Entwicklung zusammen. Die Komponenten sind nach funktionellen Kategorien geordnet.
Die Proteomik hat 189 Proteine im Speicheldrüsensekret von H. medicinalis identifiziert (Babenko et al. 2020); diejenigen, die noch auf eine vollständige biochemische Charakterisierung warten, sind am Ende der Tabelle aufgeführt.
| Komponente | MG (kDa) | Ziel | Mechanismus | Schlüsselreferenz | Pharma-Status |
|---|---|---|---|---|---|
| Antikoagulant & antithrombotisch | |||||
| Hirudin | 7.0 | Thrombin (aktives Zentrum + Exosit 1) | Direkter Thrombin-Inhibitor; Kd = 2 × 10⁻¹⁴ M; blockiert Fibrinogen-Gerinnung, Aktivierung von FV/VIII/XIII sowie Thrombozytenaggregation | Haycraft 1884; Markwardt 1957; Stone & Hofsteenge 1986 | Bivalirudin (FDA 2000), Desirudin (FDA 2003) |
| Hirudin-ähnlicher Faktor 3 | ~7 | Thrombin (Variantenbindung) | Alternativer Thrombin-Inhibitor; strukturelle Vielfalt deutet auf funktionelle Spezialisierung hin | Kvist et al. 2020 | Keine |
| Antistasin | 15 | Faktor Xa | Serin-Proteinase-Inhibitor; blockiert den Aufbau des Prothrombinase-Komplexes | Nutt et al. 1988 | Forschungsstadium |
| Lefaxin | ~14 | Faktor Xa | Alternativer Faktor-Xa-Inhibitor | Kvist et al. 2020 | Keine |
| Ghilanten | ~13 | Faktor XIIIa | Hemmt die Fibrin-Quervernetzung (Transglutaminase); verhindert die Fibrinstabilisierung | Blankenship et al. 1990 | Keine |
| LCI | ~7 | Carboxypeptidase B (TAFIa) | Verhindert die Entfernung C-terminaler Lysinreste vom Fibrin; erhält die fibrinolytische Suszeptibilität | Reverter et al. 1998 | Keine |
| Cystein-reiches Antikoagulans (CRA) | n.v. | Gerinnungskaskade (aPTT, PT, TT) | Neuartiges antikoagulantes Protein; rekombinant in E. coli; C-terminale Region für die Membranaffinität erforderlich; ihr Verlust verändert das Profil des Gerinnungsassays; erweitert das bekannte Spektrum der Speichelproteine | Manuvera et al. Biomolecules 2025 | Keine |
| Antithrombozytär | |||||
| Calin | 65 | Kollagen (Typen I, III) | Hemmt die kollagenvermittelte Thrombozytenadhäsion (NICHT die Aggregation); Schlüssel zur verlängerten Nachblutung | Munro et al. 1991 | Keine |
| Saratin | 12 | vWF-Kollagen-Interaktion | Blockiert die von-Willebrand-Faktor-abhängige Thrombozytenadhäsion an Kollagen | Barnes et al. 2001 | Forschungsstadium |
| Decorsin | 4.4 | GP IIb/IIIa (RGD-Motiv) | Inhibitor der Thrombozytenaggregation über Integrin-Blockade | Seymour et al. 1990 | Analoga (Forschung) |
| Apyrase | ~40 | Extrazelluläres ADP | Hydrolysiert ADP, das aus aktivierten Thrombozyten freigesetzt wird; entfernt den Aggregationsstimulus | Rigbi et al. 1996 | Keine |
| PAF-Inhibitor | <1 (lipid) | PAF-Rezeptor | Phosphoglycerid-Antagonist des plättchenaktivierenden Faktors (PAF) | Orevi et al. 1992 | Keine |
| Niedermolekulare Ca²⁺-Modulatoren | <0.5 | Rezeptorabhängige Ca²⁺-Kanäle; Na⁺-Kanäle | Unterdrückt den rezeptorabhängigen Ca²⁺-Einstrom in Thrombozyten; hemmt die Na⁺-vermittelte Depolarisation | Afanasyeva et al. 1999 | Keine |
| Thrombolytisch | |||||
| Destabilase-M (Isopeptidase) | 12.3 | ε-(γ-Glu)-Lys-Bindungen in stabilisiertem Fibrin | Monomerisiert D-Dimer; löst quervernetztes Fibrin auf, das gegen konventionelle Thrombolytika resistent ist; neurotroph bei 10⁻¹² M | Baskova & Nikonov 1985 | Rekombinant (präklinisch) |
| Antiinflammatorisch & Protease-Inhibitoren | |||||
| Eglins b/c | 8.1 | Elastase, Cathepsin G, Chymotrypsin, Subtilisin | Antiinflammatorische Proteinase-Inhibition; potenziert Glukokortikoide; neurotroph bei niedrigen Konzentrationen | Seemuller et al. 1977 | Forschungsstadium |
| Bdellins A/B | A: 6.3; B: 20 | Trypsin, Plasmin, Akrosin | Proteasehemmung | Fritz et al. 1969 | Keine |
| Bdellastatin | 6.3 | Trypsin, Faktor Xa | Dualer Inhibitor der Antistasin-Familie | Strube et al. 1993 | Keine |
| Hirustasin | 5.9 | Kallikrein, Trypsin, Chymotrypsin, Cathepsin G | Serin-Proteinase-Inhibitor vom Antistasin-Typ; Modulation des Kininsystems | Sollner et al. 1994 | Keine |
| LDTI | 4.7 | Mastzellentryptase, Trypsin | Kazal-Typ-Inhibitor; reduziert mastzellvermittelte Entzündung | Sommerhoff et al. 1994 | Forschungsstadium |
| Guamerin | 5.6 | Neutrophile Elastase | Elastase-spezifischer Inhibitor | Jung et al. 1995 | Keine |
| Piguamerin | ~6 | Elastase, Trypsin | Dualer Proteinase-Inhibitor (Elastase und Trypsin) | Kvist et al. 2020 | Keine |
| C1s-Komplementinhibitor | 67 | Komplement C1s | Blockiert den klassischen Komplementweg; schützt symbiotische Aeromonas vor Lyse | Baskova et al. 1988 | Keine |
| Kininases | Variabel | Bradykinin, Kinine | Abbau von Schmerzmediatoren; lokale analgetische Wirkung an der Bissstelle | Baskova et al. 1984 | Keine |
| Gewebepenetration & Remodellierung | |||||
| Hyaluronidase (Orgelase) | 28.5 | Hyaluronsäure β(1→3)-glucuronidische Bindungen | Depolymerisiert die extrazelluläre Matrix; „Spreading-Faktor", der die SGS-Penetration erleichtert; Ödemdrainage | Linker 1960; Claude 1937 | Orgelase (Biopharm-Patent) |
| Kollagenase | ~100 | Kollagenfibrillen | Abbau der extrazellulären Matrix; Geweberemodellierung an der Bissstelle | Baskova et al. 1984 | Keine |
| Histaminähnliche Verbindung | <0.5 | Nicht spezifiziert | Vasodilatation; erhöhte Kapillarpermeabilität; gesteigerter Blutfluss | Baskova & Isakhanyan 2004 (mit Verweis auf Claude 1937) | Keine |
| Antimikrobiell | |||||
| Destabilase-L (Lysozym) | 12.3 | Bakterielles Peptidoglykan | Muramidase; grampositiv bakterizid; dasselbe Protein wie Destabilase-M (duale Aktivität) | Zavalova et al. 2000 | Keine |
| Theromyzin / Theromacin / Peptid B | 8–14 | Bakterienmembranen | Antimikrobielle Peptide; Breitbandaktivität; Verhinderung von Wundinfektionen | Tasiemski et al. 2004 | Keine |
| Hirunipin-2 | n.v. | MDR-Bakterienmembranen; Biofilme | Neuartiges AMP aus H. nipponia; wirksam gegen multiresistente Bakterien einschließlich Acinetobacter; Anti-Biofilm-Aktivität; entdeckt mittels 3D-holotomographischen Screenings + KI | Advanced Science 2025 (Wiley, Korea) | Keine |
| LBrHM1 / NrlHM1 / NrlHM2 | n.v. | Bakterienmembranen | Drei neuartige AMPs aus dem H.-medicinalis-Genom identifiziert; heterologe Expression in E. coli | Serebrennikova et al. IJMS 2025 | Keine |
| Lipidmediatoren & Kleine Moleküle | |||||
| 6-Keto-PgF1α | <0.5 | Prostazyklinrezeptoren | Stabiler Prostazyklin-Metabolit; antiaggregatorisch + vasodilatatorisch | Baskova & Nikonov 1987 | Keine (endogenes Analog) |
| Phosphatidylcholin / Fettsäuren | Variabel | Zellmembranen | Liposomale Struktur; ermöglicht orale Bioverfügbarkeit (Pinozytose); Grundlage für Piyavit | [Entfernt] | Piyavit (oral) |
| Acetylcholin | 0.15 | Muskarine/nikotinische Rezeptoren | Vasodilatation; lokale Steigerung des Blutflusses | Babenko et al. 2020 | Keine (endogen) |
| Lipase / Cholesterinesterase | ~45 | Triglyceride; Cholesterinester | Lipidhydrolyse; antiatherosklerotisches Potenzial; Regulation des Lipidstoffwechsels | Baskova et al. 1984 | Aktiv in Piyavit |
| Entdeckungen der Genomik-Ära (2019–2024) | |||||
| Cystatine | ~13 | Cysteinproteasen | Proteinase-Inhibition; Gewebeprotektion; antiinflammatorisch | Kvist/Babenko 2020 | Keine |
| Ficoline | ~35 | Pathogen-Kohlenhydratmuster | Modulation der angeborenen Immunität; Komplementaktivierung über den Lektinweg | Kvist et al. 2020 | Keine |
| CRISP-Proteine | ~25 | Ionenkanäle | Modulation des Tonus der vaskulären glatten Muskulatur; möglicher vasodilatatorischer Beitrag | Babenko et al. 2020 | Keine |
| M12/M13-Proteasen | Variabel | Bioaktive Peptide | Prozessierung und Aktivierung sekretorischer Peptide; Reifung des SGS | Babenko et al. 2020 | Keine |
| Adenosin-Desaminase (ADA) | ~40 | Adenosin | Wandelt Adenosin → Inosin um; Modulation der purinergen Signalgebung; Immunmodulation | Babenko et al. 2020 | Keine |
| Tandem-Hirudin | ~14 | Unbekannt (NICHT Thrombin) | Erstes oligomeres Mitglied der Hirudin-Superfamilie; zwei globuläre Domänen; keine Thrombin-Inhibition — funktionelle Diversifizierung | Lukas u. a. 2022 | Keine |
| Pseudohirudin | 5.0 | Keine identifiziert | Im Rumpfgewebe (nicht im SGS) gefunden; ohne Antithrombin-Aktivität; Funktion unbekannt | Baskova et al. 1980 | Keine |
Funktionelle Architektur: Antikoagulationskaskade
SGS greift die Gerinnungskaskade auf jeder Ebene an — von der Initiierung bis zur Fibrinstabilisierung. Diese Blockade an mehreren Punkten stellt sicher, dass kein einzelner Resistenzmechanismus des Wirts die gerinnungshemmende Wirkung überwinden kann.
Thrombinhemmung — Hirudin
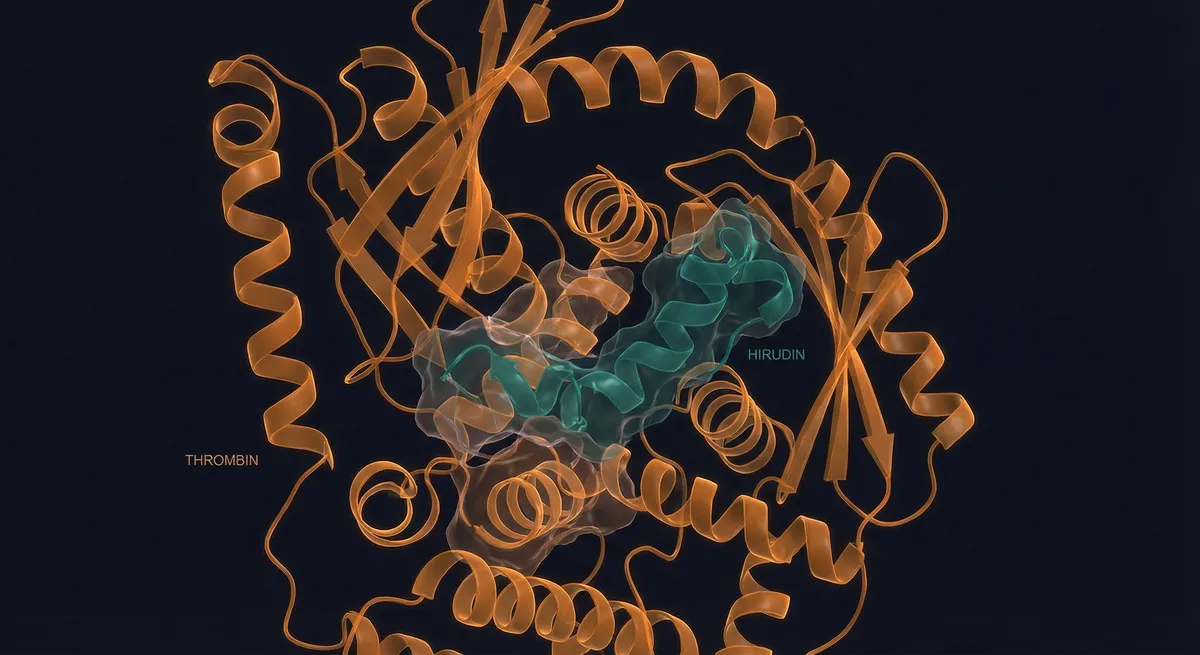
Hirudin (7,0 kDa, 65 Aminosäuren, 3 Disulfidbrücken) ist der stärkste bekannte natürliche Thrombininhibitor. Es bindet Thrombin mit einem Kd von 2 × 10⁻¹⁴ M (20 Femtomolar) über einen einzigartigen bivalenten Mechanismus: Die N-terminale globuläre Domäne besetzt die Spalte des aktiven Zentrums, während der anionische C-terminale Schwanz (sulfatiertes Tyr⁶³) an Exosit 1 bindet. Dieses duale Zusammenwirken blockiert alle Thrombinfunktionen: die Fibrinogen-Gerinnung, die Aktivierung von Faktor V/VIII/XIII sowie die thrombininduzierte Thrombozytenaggregation.
Faktor-Xa-Hemmung — Antistasin & Lefaxin
Antistasin (15 kDa) und Lefaxin (30 kDa) blockieren Faktor Xa und verhindern dadurch den Aufbau des Prothrombinase-Komplexes — den kritischen Amplifikationsschritt, der Prothrombin in Thrombin umwandelt. Dies zielt auf die Kaskade oberhalb von Thrombin ab und reduziert die Thrombinbildung, anstatt lediglich bereits vorhandenes Thrombin zu hemmen. Ursprünglich identifiziert von Tuszynski et al. (1987) in Haementeria officinalis; anschließend bei Hirudo beschrieben von Rigbi, Jackson und Atamna (1995); Lefaxin wurde aus Haementeria depressa gereinigt (Faria et al., 1999), und der lefaxin-ähnliche Treffer im Genom von H. medicinalis wurde nicht als Lefaxin-Ortholog akzeptiert (Kvist et al., 2020).
Blockade der Fibrinstabilisierung — Ghilanten
Ghilanten (~18 kDa; 119 Reste, 20 Cysteine, aus Haementeria ghilianii) ist ein Zweidomänen-Mitglied der Antistasin-Familie, das Faktor Xa potent hemmt (Ki 1,2 nM für die rekombinante N-terminale Domäne; Brankamp u. a., 1990; Blankenship u. a., 1990; Rester u. a., 2001), indem es auf den Prothrombinase-Komplex wirkt. Durch die Suppression der Thrombingeneration stromaufwärts ergänzt es die Wirkung von Destabilase auf bereits stabilisierte Gerinnsel.
Fibrinolytische Suszeptibilität — LCI
Der Blutegel-Carboxypeptidase-Inhibitor (LCI, ~7 kDa, Reverter et al., 1998) hemmt Carboxypeptidase B / TAFIa (thrombin-aktivierbarer Fibrinolyse-Inhibitor). TAFIa entfernt normalerweise C-terminale Lysinreste vom Fibrin und macht es dadurch resistent gegen Plasminogenbindung und Fibrinolyse. LCI erhält diese Lysinreste und wahrt damit die Empfänglichkeit des Thrombus für das endogene fibrinolytische System des Körpers.
Zusammenfassung der Kaskadenabdeckung
- Initiierung: Faktor-Xa-Hemmung (Antistasin, Lefaxin) → verminderte Thrombinbildung
- Amplifikation: Direkte Thrombinhemmung (Hirudin) → blockiert alle nachgeschalteten Effekte
- Stabilisierung: Faktor-XIIIa-Hemmung (Ghilanten) → verhindert die Fibrinvernetzung
- Auflösung: TAFIa-Hemmung (LCI) → erhält die Empfindlichkeit gegenüber Fibrinolyse
- Thrombolyse: Isopeptidaseaktivität (Destabilase) → löst bereits stabilisiertes Fibrin auf
Funktionelle Architektur: Antithrombozytenkaskade
Sechs SGS-Komponenten bewirken eine mehrschichtige Blockade der Kaskade aus Thrombozytenadhäsion, -aktivierung und -aggregation — und zielen auf praktisch jeden Schritt ab.
| Thrombozytenschritt | SGS-Inhibitor | Ziel | Mechanismus |
|---|---|---|---|
| 1. Adhäsion (Kollagen) | Calin (65 kDa) | Kollagen Typ I, III | Blockiert die kollagenvermittelte Thrombozytenadhäsion; hemmt die Aggregation NICHT |
| 2. Adhäsion (vWF) | Saratin (12 kDa) | vWF-Kollagen-Bindung | Verhindert die von-Willebrand-Faktor-abhängige Adhäsion unter hohen Scherkräften |
| 3. Aktivierung (ADP) | Apyrase (~40 kDa) | Extrazelluläres ADP | Hydrolysiert das aus den dichten Granula freigesetzte ADP; beseitigt den Aggregationsreiz |
| 4. Aktivierung (PAF) | PAF-Inhibitor (<1 kDa) | PAF-Rezeptor | Phosphoglycerid blockiert die von Mastzellen vermittelte Thrombozytenaktivierung |
| 5. Activation (Ca²⁺) | LMW-Ca²⁺-Modulatoren (<0.5 kDa) | Rezeptorabhängige Ca²⁺/Na⁺-Kanäle | Unterdrückt die intrazelluläre Calcium-Signalgebung durch Thrombin und PAF |
| 6. Aggregation | Decorsin (4.4 kDa) | GP-IIb/IIIa-Integrin | RGD-Motiv-Peptid blockiert den gemeinsamen Endweg der Aggregation |
| 7. Aggregation (Thrombin) | Hirudin (7.0 kDa) | Thrombin | Blockiert die thrombininduzierte Thrombozytenaggregation (sekundär zur DTI-Aktivität) |
Nachweis der Redundanz
Baskova et al. (1984, 1987) zeigten, dass bei Erschöpfung des Hirudins durch wiederholte SGS-Entnahme ohne zwischengeschaltete Blutmahlzeiten das Sekret die Fähigkeit beibehält, die Thrombozytenadhäsion und -aggregation (1987) sowie den intrinsischen Weg der Plasmahämostase (1984) zu blockieren. Dies beweist, dass Hirudin nicht der einzige antikoagulatorische Faktor ist — Calin, Saratin, Antistasin, die LMW-Ca²⁺-Modulatoren und andere Komponenten bieten redundanten Schutz. Der evolutionäre Vorteil liegt auf der Hand: Kein einzelner Wirtsresistenzmechanismus kann die Mehrfachblockade überwinden.
Funktionelle Architektur: Antiinflammatorisch
SGS enthält das breiteste Spektrum an Proteaseinhibitoren, das in einem einzelnen biologischen Sekret gefunden wurde — und zielt gleichzeitig auf die Gerinnungs-, Fibrinolyse-, Entzündungs- und Komplementkaskade ab.
Hemmung neutrophiler Proteasen
Egline b/c (8.1 kDa, Seemuller et al., 1977) hemmen neutrophile Elastase, Cathepsin G, Chymotrypsin und Subtilisin. Eglin c erhöht in vitro die Empfindlichkeit menschlicher mononukleärer Zellen gegenüber Glukokortikoiden und stimuliert bei 0.1 ng/ml das Neuritenwachstum in kultivierten Spinalganglien von Hühnerembryonen. Guamerin (6.1 kDa, Jung et al., 1995) bietet eine zusätzliche Elastase-spezifische Hemmung. Piguamerin (5.1 kDa, Kim & Kang, 1998) ist ein Plasma-/Gewebe-Kallikrein- und Trypsin-Inhibitor aus Hirudo nipponia; ein Piguamerin-ähnliches Gen wurde genomisch in H. medicinalis identifiziert (Kvist et al., 2020). Zusammen blockieren diese Verbindungen die gewebedestruktiven Proteasen, die von aktivierten Neutrophilen an Entzündungsorten freigesetzt werden.
Hemmung der Mastzelltryptase
LDTI (aus Blutegeln stammender Tryptase-Inhibitor, 4.7 kDa, Sommerhoff et al., 1994) ist ein Kazal-Typ-Inhibitor, der die Mastzell-Tryptase blockiert — ein zentraler Mediator der Soforttyp-Überempfindlichkeit, der Bronchokonstriktion und des Gewebeumbaus. Hirustasin (5.9 kDa, Sollner et al., 1994) inhibiert zusätzlich Gewebe-Kallikrein und moduliert damit den Kininweg, der Schmerz und Gefäßpermeabilität vorantreibt. Zusammen mit Kininasen (die Bradykinin direkt abbauen) erzeugen diese Verbindungen die analgetische Wirkung, die an der Bissstelle des Blutegels beobachtet wird.
Blockade des Komplementsystems
Der C1s-Komplement-Inhibitor (67 kDa, Tikhonenko, 2000) blockiert den klassischen Komplementweg an seinem Ausgangspunkt. SGS blockiert auch den alternativen Komplementweg. Sein biologischer Zweck wurde vorgeschlagen als Schutz der symbiotischen Aeromonas-Bakterien im Darm vor komplementvermittelter Lyse (Baskova & Isakhanyan, 2004); dies bleibt eine Hypothese. Die therapeutische Implikation ist eine komplementvermittelte Reduktion der Entzündung an der Behandlungsstelle.
Modulation des fibrinolytischen Signalwegs
Bdelline A/B (6.3/20 kDa; erstmals identifiziert von Fritz et al., 1969) hemmen Trypsin und Plasmin. Bdellastasin (~6 kDa, Moser et al., 1998) ist ein Serinprotease-Inhibitor der Antistasin-Familie von Trypsin, Plasmin und Akrosin (es hemmt Faktor Xa nicht).
Proteasehemmungsprofil mit mehreren Zielstrukturen
1988 identifizierten Baskova, Nikonov, Mirkamalova, Zinchenko und Kozlov die Fähigkeit des SGS, sowohl den klassischen als auch den alternativen Weg des Komplementsystems zu blockieren. In Kombination mit der Hemmung der Gerinnungskaskade (hirudin, antistasin, lefaxin), der fibrinolytischen (bdellins) und der entzündlichen (eglins, LDTI, guamerin) Kaskaden stellt dies ein breites Spektrum der Proteasehemmung dar. Es spiegelt den Multi-Target-Ansatz des gesamten SGS wider und erklärt, warum die Hirudotherapie systemische Wirkungen erzeugt, die weit über eine einfache Antikoagulation hinausgehen.
Destabilase: thrombolytisches Enzym
Destabilase ist das einzige bekannte Enzym in der Natur, das in der Lage ist, ε-(γ-Glu)-Lys-Isopeptidbindungen in quervernetztem (stabilisiertem) Fibrin zu spalten — die durch Faktor XIIIa gebildeten Bindungen, die reife Thromben gegenüber konventioneller fibrinolytischer Therapie resistent machen.
Duale enzymatische Aktivität
Zavalova et al. (2000) wiesen die lysozymartige Aktivität von Destabilase nach, und Zavalova et al. (2010) zeigten, dass ein einzelnes rekombinantes Protein (Destabilase-Lysozym) zwei unterschiedliche enzymatische Aktivitäten aufweist:
- Destabilase-M (Isopeptidase): Spaltet ε-(γ-Glu)-Lys-Bindungen im D-Dimer → monomerisiert quervernetztes Fibrin
- Destabilase-L (Lysozym): Muramidase-Aktivität → hydrolysiert bakterielles Peptidoglykan → bakterizid gegen grampositive Erreger
Diese Doppelfunktion — thrombolytisch + antibakteriell in einem Molekül — ist in der Enzymologie einzigartig.
Rekombinant Destabilase
Kurdyumov et al. (2015) produzierten drei rekombinante Destabilase-Lysozym-Isoformen, und Bobrovsky et al. (2021) zeigten, dass rekombinante Destabilase menschliche Blutgerinnsel in vitro auflöst. Eine Kristallstruktur der Destabilase mit 1.1 Å Auflösung wurde von Marin et al. (2023) berichtet, die höchste Auflösung unter den Einträgen zu Hirudo medicinalis in der Protein Data Bank (PDB 8BBU). Sowohl die Isopeptidase- als auch die Lysozymaktivität blieben in der rekombinanten Form erhalten, was auf ein Potenzial für die pharmazeutische Entwicklung hindeutet.
Neurotrophe Aktivität
Destabilase zeigt neurotrophe Wirkungen bei außerordentlich niedrigen Konzentrationen — 10⁻¹² M (pikomolar). Bei diesen Konzentrationen fördert sie das Neuritenwachstum in kultivierten Neuronen, was auf eine von ihrer thrombolytischen Aktivität völlig unabhängige Funktion hindeutet. Diese neurotrophe Fähigkeit teilt sie mit Bdellinen und Bdellastatin, was darauf hindeutet, dass SGS-Proteaseinhibitoren eine doppelte Rolle bei Gewebereparatur und neuraler Erholung spielen könnten.
Saisonale Verfügbarkeit
Die Isopeptidase-Aktivität (thrombolytische Aktivität) der Destabilase verschwindet im Herbst und Winter praktisch vollständig, tritt im Mai wieder auf und bleibt bis September hoch (Baskova & Isakhanyan, 2004). Diese saisonale Schwankung hat unmittelbare klinische Bedeutung: Im Winter eingesetzte Blutegel zeigen eine etwas höhere Antithrombin-Aktivität, aber eine verminderte thrombolytische Kapazität, während Sommer-Blutegel beide Aktivitäten in vollem Umfang bieten.
Gewebepenetration & Ausbreitungsmechanismus
Das SGS muss das Wirtsgewebe rasch durchdringen, um seine bioaktive Fracht in das mikrozirkulatorische Gefäßbett abzugeben. Drei Komponenten erleichtern diesen Prozess.
Hyaluronidase (Orgelase)
Ein 28.5 kDa-Enzym, das Hyaluronsäure über eine einzigartige endo-β-Glucuronidase-Spezifität für β(1→3)-Glucuronid-Bindungen depolymerisiert – im Gegensatz zu Säugetier-Hyaluronidasen, die β(1→4)-Hexosaminid-Bindungen spalten (Linker, Meyer & Hoffman, 1960). Zuerst als „Ausbreitungsfaktor“ beschrieben (ein Konzept, das auf Duran-Reynals zurückgeht), wobei das Enzym von Karl Meyers Arbeitsgruppe charakterisiert wurde; die Egel-Hyaluronidase erhöht die Gewebepermeabilität. Von Yuki & Fishman (1963) gereinigt; es wurde bestätigt, dass es Chondroitin und dessen Derivate, anders als β-Hyaluronidasen, nicht hydrolysieren kann. Thermisch stabil (das Enzym aus Büffelegeln behält nach 30 min bei 50°C mindestens 70 % seiner Aktivität), über einen weiten pH-Bereich aktiv und – für klinische Anwendungen von entscheidender Bedeutung – nicht durch Heparin hemmbar (anders als testikuläre Hyaluronidase), was die gleichzeitige Anwendung mit einer Antikoagulanzientherapie ermöglicht. Von Biopharm UK (Erfinder Roy T. Sawyer und Jeffrey Edwards; EP 0193330, Priorität 1985; US 4,820,516, erteilt 1989) als Orgelase – ein Enzym aus Büffelegeln (Hirudinariinae) und nicht aus Hirudo medicinalis – für kardiovaskuläre und ophthalmologische Anwendungen patentiert, einschließlich akuter Myokardischämie, Glaukom und Netzhautablösung, sowie als Ausbreitungsfaktor und gewebedurchdringender Wirkstofftransporter.
Collagenase
Enzym, das Kollagen in der extrazellulären Matrix abbaut (Rigbi et al., 1987). Wirkt synergistisch mit der Hyaluronidase: Während die Hyaluronidase die Grundsubstanz zwischen den Kollagenfibrillen entfernt, baut die Kollagenase die Fibrillen selbst ab. Dieser doppelte Abbau der EZM ermöglicht eine tiefe Gewebepenetration durch andere SGS-Komponenten.
Histaminähnlicher Vasodilatator
Über das Speichelsekret von Egeln wurde berichtet, dass es eine histaminähnliche Wirkung ausübt (Claude, 1937, zitiert nach Baskova & Isakhanyan, 2004). Dies verstärkt die Durchblutung der Bissstelle und bewirkt die anhaltende Vasodilatation, die während und nach der Nahrungsaufnahme beobachtet wird. In Kombination mit 6-keto-PgF1α (Prostacyclin-Metabolit; Baskova & Nikonov, 1987) kann SGS mehr als einen vasodilatatorischen Mechanismus kombinieren.
Antimikrobielle Abwehr
Die antimikrobielle Aktivität des SGS erfüllt einen zweifachen evolutionären Zweck: die Verhinderung einer Infektion an der Bisswunde (Schutz der Blutmahlzeit des Wirts vor Kontamination) und die Aufrechterhaltung des Darmmikrobioms des Blutegels.
Destabilase-L (Lysozym)
Dasselbe 12,3 kDa Destabilase-Protein, das Isopeptidase-(thrombolytische) Aktivität aufweist, fungiert auch als Muramidase – hydrolysiert bakterielles Zellwand-Peptidoglycan. Dieses zweifunktionelle Enzym bewirkt grampositive bakterizide Aktivität am Bissort und löst gleichzeitig vernetztes Fibrin auf. Die Lysozymaktivität wurde von Zavalova u. a. (2000) bestätigt und blieb in allen drei rekombinanten Isoformen erhalten (Kurdyumov u. a., 2015).
Antimikrobielle Peptide (klassisch)
Tasiemski et al. (2004) charakterisierten zwei antimikrobielle Peptide — theromacin und theromyzin — aus dem Blutegel Theromyzon tessulatum.
Strategie zur Umgehung des Komplements
Es wurde die Hypothese aufgestellt, dass der C1s-Komplementinhibitor (67 kDa) die symbiotischen Aeromonas-Bakterien des Blutegels während der Nahrungsaufnahme vor der lytischen Wirkung des Komplements schützt (eine Hypothese, kein gesicherter Befund).
Aeromonas-Paradoxon
Der medizinische Blutegel beherbergt Aeromonas hydrophila / A. veronii als obligate Darmsymbionten. Diese Bakterien produzieren Enzyme, die für die Verdauung der Blutmahlzeit unerlässlich sind, jedoch potenziell pathogen für den Menschen sind. Antimikrobielle Peptide des SGS kontrollieren die Bakterienlast an der Bissstelle teilweise, doch prophylaktische Antibiotika (fluoroquinolones oder trimethoprim-sulfamethoxazole) sind gängige klinische Praxis. Siehe die spezielle Aeromonas-Management-Seite für Protokolle.
Seasonal Variation & Klinisch Implications
Die Zusammensetzung des SGS ist nicht statisch — sie variiert je nach Jahreszeit, Sammelhäufigkeit und Fütterungszustand, mit direkten Auswirkungen auf die klinische Standardisierung.
| Parameter | Frühling/Sommer (Mai–Sep) | Herbst/Winter (Okt–Apr) | Klinische Implikation |
|---|---|---|---|
| Antithrombin-Aktivität (Hirudin) | Moderate | Higher | Winterblutegel liefern möglicherweise eine stärkere Antikoagulation |
| Thrombolytische Aktivität (Destabilase-Isopeptidase) | Hoch (vorhanden Mai–Sep.) | Praktisch nicht vorhanden | Sommerblutegel bieten thrombolytische + antikoagulatorische Wirkung; Winterblutegel nur antikoagulatorische Wirkung |
| Gesamtausstattung der SGS | Volles Aktivitätsspektrum | Reduzierte thrombolytische Komponente | Biofabrik-Protokolle sollten die Saisonalität bei der Produktstandardisierung berücksichtigen |
Auswirkungen der Sammelhäufigkeit
Wiederholte SGS-Gewinnung in Abständen von einem Monat ohne zwischenzeitliche Blutmahlzeiten zeigt ein klares Erschöpfungsmuster (Baskova et al., 1984):
- Sammlungen 1–2: Hohe Antithrombin-Aktivität
- Entnahme 3: Starker Abfall der Antithrombin-Aktivität
- Entnahme 4: Antithrombin-Aktivität verschwindet vollständig
- Nach der Blutmahlzeit: Volle Aktivität wiederhergestellt
Entscheidend ist, dass die Thrombozytenaggregationshemmung und die Hemmung des intrinsischen Wegs bestehen bleiben, selbst wenn Hirudin vollständig aufgebraucht ist — was redundante gerinnungshemmende Mechanismen bestätigt.
Zeitliche Variation der Nahrungsaufnahme
Die Methode des kontinuierlichen Flusses (Baskova et al., 2001) zeigte, dass sich die SGS-Zusammensetzung während einer einzigen Nahrungsaufnahme ändert. Die sequenzielle UV-Spektralanalyse ergab, dass sich die Absorptionsmaxima im Verlauf der Nahrungsaufnahme zu längeren Wellenlängen verschieben:
- Erste Minuten: Maximale Peptid-/Proteinkonzentration (Absorption im kurzwelligen UV-Bereich) — stärkste Abgabe von Antikoagulanzien
- Nachfolgende Fraktionen: Nur Spurenmengen
- Letzte Fraktion (15.): Minimaler Gehalt an bioaktiven Substanzen
Diese „Front-Loading“-Strategie liefert die wichtigsten antikoagulatorischen Moleküle innerhalb der ersten Minuten des Ansaugens.
Niedermolekulare Ionenmodulatoren
Rezeptorabhängige Ionenkanalmodulation
Die LMW-Fraktion (<500 Da) von SGS bewirkt hochspezifische Effekte auf den Ionentransport der Thrombozyten (Afanasyeva et al., 1999):
| Ionenkanal | SGS-LMW-Effekt | Vergleich mit Losartan |
|---|---|---|
| Rezeptorabhängiger Ca²⁺-Einstrom (Thrombozyten) | Unterdrückt (thrombin- & PAF-Antwort) | Ähnliche Wirkung |
| Rezeptorabhängige Na⁺-Depolarisation | Suppressed | Für losartan nicht berichtet |
| Rezeptorunabhängiger Ca²⁺-Ausstrom (Erythrozyten) | No effect | Durch Losartan verändert |
| Ca²⁺-abhängige K⁺-Kanäle (Erythrozyten) | No effect | Durch Losartan verändert |
Diese Selektivität für rezeptorabhängigen (aber nicht rezeptorunabhängigen) Ionentransport deutet darauf hin, dass die LMW-Fraktion auf Rezeptorebene wirkt und nicht auf die Ionenkanäle selbst — ein Mechanismus, der sich von konventionellen Kalziumkanalblockern unterscheidet. Die molekulare Identität dieser Modulatoren muss noch aufgeklärt werden.
Lipidpharmakologie
SGS enthält Lipide mit funktioneller Bedeutung sowohl für die antithrombozytäre Aktivität als auch für die pharmazeutische Formulierung.
Lipidzusammensetzung
- Gesamtlipide: in SGS vorhanden
- Neutrallipide: ~2/3 der Gesamtmenge
- Polare Lipide: ~1/3 der Gesamtmenge
- Phosphatidylcholin: Erhebliche Mengen; ermöglicht die Bildung liposomaler Strukturen
- Freie Fettsäuren: In erheblicher Menge vorhanden
- Phosphoglyceridol: Wirkt als PAF-Antagonist – hemmt die PAF-stimulierte Thrombozytenaggregation (Orevi et al., 1992)
Orales Bioavailability & Piyavit
Der Lipidgehalt des SGS könnte die Bildung liposomaler Strukturen ermöglichen, die eine orale Resorption über Pinozytose erleichtern — durch Übertritt aus dem Darm in den Blutkreislauf (Baskova & Nikonov, 1986). Diese Eigenschaft bildet die pharmakologische Grundlage für Piyavit, die orale pharmazeutische Formulierung, die aus dem Extrakt des gesamten Blutegels gewonnen wird. Piyavit wurde in Russland registriert (1994, erneut registriert 2001) zur Behandlung und Vorbeugung der oberflächlichen Venenthrombophlebitis und diabetischer Mikro- und Makroangiopathien (im Rahmen einer umfassenden Therapie).
Prostacyclin-Metabolit
1987 wiesen Baskova und Nikonov Prostaglandine im SGS in Form von 6-Keto-Prostaglandin F1α nach, einem stabilen Metaboliten des Prostacyclins (PGI₂). Prostacyclin ist der stärkste endogene Hemmstoff der Thrombozytenaggregation und ein potenter Vasodilatator. Sein Vorhandensein im SGS erschließt einen zusätzlichen aggregationshemmenden und gefäßerweiternden Wirkweg — als Ergänzung zu hirudin (Antithrombin), calin (Adhäsionshemmung) und decorsin (Aggregationshemmung).
Lipase & Cholesterinesterase
SGS enthält Lipase (Triglyceridlipase) und Cholesterinesterase-Aktivitäten (Baskova et al., 1984), die die Hydrolyse von Triglyceriden und Cholesterinestern katalysieren. Diese Enzyme werden mit den antiatherosklerotischen Eigenschaften in Verbindung gebracht, die in klinischen Studien beobachtet wurden (ausführlich auf der Seite zu den Mechanismen der Atherosklerose). Sie sind außerdem ein aktiver Bestandteil der oralen Formulierung Piyavit.
DNA-Methylierung & epigenetische Effekte
Epigenetische Modifikation durch SGS
Nikonov et al. (1990) wiesen einen bemerkenswerten epigenetischen Effekt nach: SGS stimuliert einen Anstieg des 5-Methylcytosin-Gehalts um 39% in der Rattenleber-DNA innerhalb einer Stunde nach intraperitonealer Perfusion. Wesentliche Merkmale:
- Ausmaß: Nicht belegte Behauptung entfernt.
- Geschwindigkeit: Nachweisbar innerhalb von 1 Stunde
- Reversibilität: Vollständige Rückbildung innerhalb von 24 Stunden
- Gewebe: In der Leber nachgewiesen (systemische Wirkung)
Die DNA-Methylierung ist ein grundlegender epigenetischer Mechanismus, der die Genexpression reguliert, ohne die DNA-Sequenz zu verändern. Eine vorübergehende, reversible Zunahme der Methylierung könnte die Expression entzündungsrelevanter Gene, die Zelldifferenzierung und die Signalwege der Geweberegeneration modulieren. Dieser Befund stellt eine der frühesten Demonstrationen einer pharmakologisch induzierten, reversiblen epigenetischen Modifikation dar — und nimmt das moderne Feld der epigenetischen Therapeutika um Jahrzehnte vorweg. Die konkret verantwortliche SGS-Komponente sowie die betroffenen Zielgene sind bislang nicht identifiziert und stellen eine bedeutende Forschungschance dar.
Fehlen unspezifischer proteolytischer Aktivität
Was SGS NICHT tut
- No caseinolytic activity (Rigbi et al., 1987)
- Kann Plasminogen nicht zu Plasmin aktivieren
- Kann nicht-stabilisiertes Fibrin nicht auflösen (Baskova & Nikonov, 1985)
- Kann plasminspezifisches chromogenes Substrat nicht hydrolysieren (D-Val-Leu-Lys paranitroanalide)
- Keine breitbandige proteolytische Aktivität in irgendeiner Jahreszeit
Warum das wichtig ist
Das Fehlen generalisierter proteolytischer Aktivität ist ebenso wichtig wie die vorhandenen spezifischen Enzymaktivitäten. Ein Sekret mit Breitband-Proteasen würde seine eigenen bioaktiven Bestandteile — hirudin, calin, destabilase, eglins — zerstören, bevor diese ihre Wirkung entfalten könnten. Die evolutionäre Lösung ist elegant: SGS enthält hochgradig spezifische Hydrolasen (destabilase spaltet ausschließlich ε-(γ-Glu)-Lys-Bindungen; hyaluronidase spaltet ausschließlich HA-β(1→3)-Bindungen), jedoch keine generalisierten Proteasen, wodurch gewährleistet ist, dass alle bioaktiven Proteine im Wundmilieu intakt erhalten bleiben.
Genomische Revolution: Von der Biochemie zur Multi-Omik
Die klassische Biochemie charakterisierte die Bestandteile des SGS einzeln nacheinander. Moderne Genomik, Transkriptomik und Proteomik identifizierten 189 Speichelproteine in H. medicinalis und 344 in H. verbana (Babenko et al. 2020) — und haben damit unser Verständnis des medizinischen Blutegels als pharmakologische Ressource grundlegend verändert.
| Studie | Methode | Wichtige Befunde | Neuartige Komponenten |
|---|---|---|---|
| Liu et al. (2019) | Proteom + Transkriptom-Integration | Ein umfangreiches Repertoire vollständiger Proteinsequenzen und bioaktiver Transkripte über mehrere funktionelle Kategorien hinweg | Mehrere neuartige Proteine in allen 6 Kategorien |
| Babenko u. a. (2020) | Genomzusammenstellung (H. medicinalis) | Entwurf der Genomassemblierung; mehrere Antikoagulations- und Hämostasehemmproteine | Hirudin-ähnlicher Faktor 3, Lefaxin, Piguamerin, Ficoline, Cystatine |
| Babenko et al. (2020) | RNA-Seq an Speichelzellen (3 Arten) | Vergleichendes Speicheldrüsen-Transkriptom über H. medicinalis, H. orientalis, H. verbana hinweg | M12/M13-Proteasen, CRISP-Proteine, Apyrase, ADA, Cystatine, Ficoline, Acetylcholin |
| Lukas u. a. (2022) | Strukturbiologie | Tandem-Hirudin: erstes oligomeres Mitglied der hirudin-Superfamilie aus Hirudinaria manillensis | Zwei globuläre Domänen in Tandem; ohne C-terminalen Schwanz; KEINE Thrombinhemmung |
| Guan et al. (2024) | Proteom + Transkriptom (Hunger) | Hungerinduzierte Veränderungen der SGS-Zusammensetzung von Hirudo nipponia | Zeigte, dass der Ernährungszustand die SGS-Proteinexpression moduliert |
| Manuvera u. a. (2024) | Rekombinante Expression + Gerinnungs-Assays | Neues cysteinreiches Antikoagulans (CRA-Protein); hohe Aktivität in aPTT, PT, TT; C-terminales Motiv entscheidend | Neues Antikoagulans erweitert das charakterisierte Sekretom (Biomolecules 15(12):1633) |
| Chosun/KBSI (2025) | 3D-holotomographisches Screening + KI-Bioinformatik | Hirunipin-2: neuartiges AMP aus den Speicheldrüsen von H. nipponia; anti-MDR- und Anti-Biofilm-Aktivität | Wirksam gegen multiresistente Acinetobacter; erste KI-gestützte AMP-Entdeckung aus Blutegel-SGS (Advanced Science, Wiley) |
| Serebrennikova et al. (2025) | Genom-Mining + heterologe Expression | Drei neuartige AMPs: LBrHM1, NrlHM1, NrlHM2 aus H. medicinalis | Erweitert das Repertoire antimikrobieller Peptide über das klassische Trio hinaus (IJMS 26(14):6903) |
| EV biogenesis (2025) | Zellbiologie (EV-Charakterisierung) | Erste Studie zur Biogenese extrazellulärer Vesikel in Speicheldrüsenzellen von H. nipponia | EVs als potenzielle natürliche bioaktive Trägersysteme für aus Blutegeln gewonnene Verbindungen — Plattform für die Wirkstoffabgabe (ScienceDirect) |
| Microalgae hirudin (2025) | Rekombinante Expression in C. reinhardtii | Erstes funktionelles Hirudin, das in einer GRAS-Mikroalge mit korrekter Tyrosin-Sulfatierung hergestellt wurde | Überwindet die Grenzen von E. coli/Hefe; skalierbare pflanzenbasierte Produktion (bioRxiv-Preprint) |
Umfang der Entdeckungen
- Klassische Biochemie (1884–2004): mehr als 20 Komponenten charakterisiert
- Proteomik/Transkriptomik (2020): Ein großes Repertoire an Speichelproteinen wurde charakterisiert
- Genomik (2020): mehrere antikoagulatorische und antihämostatische Gene kodiert
- Neue Verbindungen (2024–2025): CRA-Protein, hirunipin-2, LBrHM1/NrlHM1/NrlHM2 — Erweiterung des wachsenden Repertoires an charakterisierten Speichelkomponenten
- Bisher insgesamt identifiziert: >200 verschiedene Proteine funktionell beschrieben
Speziesvergleich
Babenko et al. (2020) — unter Mitwirkung von I.P. Baskova, der Autorin des grundlegenden Werks — führten eine vergleichende RNA-seq-Analyse an drei Arten des medizinischen Blutegels durch. Die Speichelsekrete der drei Arten weisen eine ähnliche Zusammensetzung auf: Alle drei teilen 39 orthologe Proteincluster, darunter M12- und M13-Proteasen, CRISP, Apyrase, Cystatine, Hyaluronidase und Ficoline. Die Anzahl der identifizierten Proteine unterschied sich zwischen den Arten (189 bei H. medicinalis, 86 bei H. orientalis, 344 bei H. verbana), und eine Cystatin-Sequenz wurde nur im H. verbana-Proteom gefunden. Diese Unterschiede könnten klinisch relevant sein: H. verbana (die in den USA am häufigsten gelieferte Art) und H. medicinalis (der europäische Standard) liefern möglicherweise subtil unterschiedliche SGS-Zusammensetzungen.
Pharmazeutisches Erbe
Destabilase zeigt neurotrophe Wirkungen bei außerordentlich niedrigen Konzentrationen — 10⁻¹² M (pikomolar). Bei diesen Konzentrationen fördert es das Neuritenwachstum in kultivierten Neuronen, was auf eine Funktion hindeutet, die sich vollständig von seiner thrombolytischen Aktivität unterscheidet. Diese neurotrophe Fähigkeit wird mit bdellins und bdellastatin geteilt, was darauf hinweist, dass SGS-Proteasehemmer eine Doppelrolle bei der Geweberegeneration und der neuralen Erholung spielen könnten.
| Wirkstoff | SGS-Vorläufer | FDA-Zulassung | Indikation | Status |
|---|---|---|---|---|
| Bivalirudin (Angiomax) | Hirudin → synthetisches 20-AS-Analogon | 2000 | Antikoagulation bei PCI (ACC/AHA Klasse I für STEMI) | Generika verfügbar; Spitzenumsatz 636 Mio. USD (2014) |
| Desirudin (Iprivask) | Rekombinantes Hirudin (65 AS) | 2003 | DVT-Prophylaxe bei Hüftgelenkersatz | Nicht mehr im Handel |
| Lepirudin (Refludan) | Rekombinantes Hirudin (65 AS) | 1998 | Heparininduzierte Thrombozytopenie | Zurückgezogen (2012) |
Pipeline-Kandidaten
- Rekombinant destabilase: Thrombolytic + antibacterial; crystal structure at 1.1 Å; dissolves human clots in vitro (preclinical)
- Decorsin-Analoga: GP-IIb/IIIa-Antagonisten für die Thrombozytenaggregationshemmung (Forschung)
- Saratin: Anti-Adhäsion zur Prävention arterieller Thrombosen (Forschung)
- Eglin c-Analoga: Entzündungshemmende Protease-Inhibition (Forschung)
- Orgelase (Hyaluronidase): kardiovaskuläre/ophthalmologische Anwendungen (patentiert)
- Neuartige Hirudin-Varianten: modifizierte Varianten in der präklinischen Entwicklung
- Aus Mikroalgen gewonnenes Hirudin (2025): Erstes funktionelles rekombinantes Hirudin in Chlamydomonas reinhardtii (GRAS-Mikroalge) mit korrekter Tyrosin-Sulfatierung — überwindet die Limitationen von E. coli und Hefe für eine skalierbare, kostengünstige Produktion (bioRxiv-Preprint)
- Wirkstoffabgabe über extrazelluläre Vesikel (EV) (2025): Erste Studie zur EV-Biogenese in Speicheldrüsenzellen von H. nipponia — EVs als natürliche bioaktive Nanoträger für aus Blutegeln gewonnene Verbindungen, die eine neuartige Plattform für die Wirkstoffabgabe eröffnen (ScienceDirect)
- Hirunipin-2 Anti-MDR-Peptid (2025): Neuartiges AMP aus H. nipponia, wirksam gegen multiresistente Bakterien einschließlich Acinetobacter; Anti-Biofilm-Aktivität — Potenzial zur Bewältigung der Krise der antimikrobiellen Resistenz (Advanced Science, Wiley)
Zoopharmazeutischer Kontext
Unter allen von Tieren stammenden Arzneimitteln nimmt der medizinische Blutegel eine einzigartige Stellung ein. Der medizinische Blutegel ist die Quelle oder Inspiration für drei Antikoagulanzien (lepirudin, desirudin, bivalirudin) – ein ungewöhnlich großer Beitrag für einen einzelnen Organismus unter den von Tieren stammenden Arzneimitteln. Zum Vergleich: Kegelschnecken steuerten eines bei (ziconotide), die Gila-Krustenechse eines (exenatide) und Vipern eines (captopril-Inspiration). Der unverhältnismäßig große Beitrag des Blutegels spiegelt sowohl die pharmakologische Reichhaltigkeit von SGS als auch die 141-jährige Forschungstradition nach Haycrafts Entdeckung wider.
Die unerschlossene Pharmakopöe
Bekannte Unbekannte
- Pseudohirudin (5 kDa): Hirudin-Homolog ohne Antithrombin-Aktivität — Funktion seit 1980 unbekannt
- Entscheidend ist, dass die Thrombozytenhemmung und die Hemmung des intrinsischen Wegs bestehen bleiben, selbst wenn hirudin vollständig verbraucht ist — was redundante antikoagulatorische Mechanismen bestätigt.
- CRISP-Proteine (CAP-Superfamilie): ähnlich dem Hakenwurm-Kaliumkanalblocker AcK1 und den Schlangengiften (triflin, natrin-1); Funktion im Blutegelspeichel nicht gesichert
- Ficoline: Modulatoren der angeborenen Immunität — therapeutisches Potenzial unerschlossen
- M12/M13-Proteasen: Reifungsenzyme des SGS — könnten sie für die Prodrug-Aktivierung genutzt werden?
- Adenosindeaminase: Modulator der purinergen Signalübertragung — immunmodulatorisches Potenzial
Künftige Entdeckungsansätze
- Vollständige Genom-Annotation: Abschluss der funktionellen Annotation aller 189 identifizierten Speichelproteine
- KI-gestütztes Wirkstoffdesign: Verwendung von SGS-Verbindungsgerüsten als Ausgangspunkte für die computergestützte Optimierung — inzwischen validiert durch die KI-gestützte Entdeckung von Hirunipin-2 (2025)
- Speziesvergleich: Systematischer Vergleich der SGS zwischen H. medicinalis, H. verbana, H. orientalis und nichtmedizinischen Arten
- Einzelzell-Transkriptomik: Identifizierung, welche Speicheldrüsen-Zelltypen welche Verbindungen produzieren
- Kryo-EM-Strukturbiologie: Aufklärung der 3D-Strukturen aller wichtigen SGS-Proteine für ein strukturbasiertes Wirkstoffdesign
- Standardisierung in klinischer Qualität: Entwicklung validierter Assay-Panels für die Qualitätskontrolle der SGS
- EV-basierte Wirkstoffabgabe: Nutzung der in den Speicheldrüsen von H. nipponia entdeckten Biogenese extrazellulärer Vesikel (2025) als natürliche Nanoträger für die gezielte Abgabe von aus Blutegeln gewonnenen Therapeutika
- Alternative Produktionsplattformen: Ausweitung der mikroalgenbasierten rekombinanten Produktion (nachgewiesen für Hirudin in C. reinhardtii, 2025) auf weitere SGS-Proteine, die posttranslationale Modifikationen erfordern
Die SGS von Hirudo medicinalis stellt eines der pharmakologisch reichhaltigsten biologischen Sekrete im Tierreich dar. Ihre systematische Charakterisierung, die noch längst nicht abgeschlossen ist, bringt weiterhin Moleküle mit potenziellen therapeutischen Anwendungen zum Vorschein, die weit über die Antikoagulation hinausreichen — wie allein im Jahr 2025 durch fünf bedeutende Entdeckungen belegt wurde. ASH befürwortet fortgesetzte Investitionen in die SGS-Forschung als Grundlage für eine evidenzbasierte Praxis und pharmazeutische Innovation.
Wichtige Studien zur Charakterisierung von SGS
| Studie | Design | Population (n=) | Intervention | Primäres Outcome | Ergebnis |
|---|---|---|---|---|---|
| Haycraft JB 1884 | Biochemical characterization | Hirudo medicinalis SGS (n=NR) | Extraction and bioassay | Anticoagulant activity | First demonstration leech secretion prevents coagulation; identified unicellular glands. Proc R Soc Lond |
| Markwardt F 1957 | Biochemical characterization | Hirudo medicinalis SGS (n=NR) | Extraction and purification | Thrombin inhibition | First isolation of pure hirudin; thrombin-specific inhibition confirmed. Hoppe-Seyler Z Physiol Chem |
| Fritz H et al. 1969 | Biochemical characterization | Hirudo medicinalis SGS (n=NR) | Extraction and purification | Protease inhibition | Discovery of bdellin A (7 kDa) and B (5 kDa); trypsin/plasmin inhibition. Hoppe-Seyler Z Physiol Chem |
| Seemuller U et al. 1977 | Biochemical characterization | Hirudo medicinalis SGS (n=NR) | Extraction and purification | Neutrophil elastase / cathepsin G inhibition | Isolation of eglins b/c (8.1 kDa); neutrophil elastase and cathepsin G inhibition. Hoppe-Seyler Z Physiol Chem |
| Baskova IP & Nikonov GI 1985 | Biochemical characterization | Hirudo medicinalis SGS (n=NR) | Extraction and enzymatic assay | Fibrinolytic / isopeptidase activity | Discovery of destabilase isopeptidase — first enzyme cleaving ε-(γ-Glu)-Lys bonds in stabilized fibrin. Biokhimiya |
| Baskova IP et al. 1987 | In vitro / preclinical | Hirudo medicinalis SGS (n=NR) | Hirudin-depleted SGS fraction bioassay | Antiplatelet and intrinsic pathway inhibition | Hirudin-depleted SGS retains antiplatelet and intrinsic pathway inhibition — redundant anticoagulant mechanisms demonstrated. Biokhimiya |
| Rigbi M et al. 1987 | Biochemical characterization | Hirudo medicinalis SGS (n=NR) | Phagostimulation collection (arginine-based) | Eglin-like and anticoagulant activities | Developed arginine-based phagostimulation method; confirmed eglin-like and anticoagulant activities in collected secretion. Comp Biochem Physiol |
| Seymour JL et al. 1990 | Biochemical characterization | Macrobdella decora SGS (n=NR) | Extraction and purification | Platelet GP IIb/IIIa integrin antagonism | Discovery of decorsin (4.4 kDa, RGD motif) — platelet GP IIb/IIIa integrin antagonist. J Biol Chem |
| Munro R et al. 1991 | Biochemical characterization | Hirudo medicinalis SGS (n=NR) | Extraction and purification | Platelet adhesion inhibition | Characterization of calin (65 kDa) — collagen-mediated platelet adhesion inhibitor; key mechanism for prolonged post-bite bleeding. Blood Coagul Fibrinolysis |
| Baskova IP et al. 2001 | Biochemical characterization | Hirudo medicinalis SGS (n=NR) | Contamination-free phagostimulation collection | SGS composition during feeding | Contamination-free collection method developed; SGS composition varies during feeding — most potent peptides released in first minutes. Biochemistry (Moscow) |
| Zavalova LL et al. 2000 | Biochemical characterization | Hirudo medicinalis SGS (n=NR) | Recombinant expression and enzymatic assay | Dual isopeptidase / lysozyme activity | Destabilase exhibits both isopeptidase (thrombolytic) and lysozyme (antibacterial) activities in a single 12.3 kDa protein. Biochemistry (Moscow) |
| Kvist S et al. 2020 | Genome assembly | Hirudo medicinalis SGS (n=NR) | Whole-genome sequencing and annotation | Antihemostatic gene catalog | Draft genome assembly with annotation of multiple anticoagulation and antihemostatic protein genes. Sci Rep |
| Babenko VV et al. 2020 | Proteomics/transcriptomics | 3 Hirudo species SGS (n=NR) | Salivary cell RNA-seq | Novel secreted protein discovery | RNA-seq across 3 species; discovered M12/M13 proteases, CRISP proteins, apyrase, ADA, cystatins, and ficolins. BMC Genomics |
| Lukas P et al. 2022 | Biochemical characterization | Hirudinaria manillensis SGS (n=NR) | Recombinant expression and structural analysis | Hirudin superfamily structure | Tandem-Hirudin — a tandem two-domain member of the hirudin superfamily; no thrombin inhibition despite structural similarity. Parasitol Res |
| Kurdyumov AS et al. 2015 | In vitro / preclinical | Recombinant Hirudo medicinalis destabilase (n=NR) | Recombinant expression and enzymatic characterization | Isopeptidase / lysozyme activity | Characterization of recombinant destabilase-lysozyme isoforms retaining isopeptidase (thrombolytic) and antibacterial activities. BMC Biochem |
Evidenzlücken & Forschungsprioritäten
Trotz 141 Jahren der Forschung bleibt die SGS-Charakterisierung unvollständig. Die Anzahl der identifizierten Proteine beläuft sich mittlerweile auf Hunderte (Babenko et al., 2020; Manuvera et al., 2025; Serebrennikova et al., 2025). Zu den wichtigsten Forschungsprioritäten gehören:
Funktionelle Charakterisierung
- Viele der 189 Proteine, die durch Proteomik im Speichelsekret von H. medicinalis identifiziert wurden (Babenko et al., 2020), warten auf ihre biochemische Charakterisierung
- CRISP-Proteine, Ficoline sowie M12/M13-Proteasen besitzen eine unbekannte therapeutische Relevanz
- Die Funktion von Tandem-Hirudin (trotz Hirudin-Homologie, jedoch ohne Thrombinaktivität) ist unbekannt
- Pseudohirudin (5 kDa, keine Antithrombinaktivität) — Funktion seit 1980 ungeklärt
Standardisierung & Translation
- Saisonale Schwankungen erschweren die Standardisierung der Dosierung für den klinischen Einsatz
- Artunterschiede (H. medicinalis vs H. verbana vs H. orientalis) unzureichend charakterisiert
- Kein validiertes Assay-Panel für die Qualitätskontrolle der SGS bei Blutegeln in klinischer Qualität
- KI-gestütztes Wirkstoffdesign aus SGS-Gerüsten — inzwischen teilweise validiert durch die Entdeckung von Hirunipin-2 mittels KI-Bioinformatik (2025)
- Die mikroalgenbasierte rekombinante Produktion (Hirudin in C. reinhardtii, 2025) erfordert eine Maßstabsvergrößerung und eine Validierung in klinischer Qualität
- Die Biogenese extrazellulärer Vesikel in Speicheldrüsenzellen von H. nipponia wurde morphologisch beschrieben (2025); ihre Fracht und jegliches Potenzial zur Wirkstoffabgabe sind bislang nicht untersucht
Verwandte Forschung
Leech Salivary Proteome and Transcriptome: 434 Deduced Protein Sequences
Proteomic analysis of leech salivary glands combined with transcriptome data deduced 434 full-length protein sequences; 44 proteins and 221 transcripts of bioactive molecules were involved in leech sucking pathways. The abstract does not name the leech species.
Liu Z, Tong X, Su Y, et al. · Journal of Proteomics
Comparative Transcriptomics of Three Hirudo Species
RNA-seq of laser-microdissected salivary cells and muscle from three Hirudo species (H. medicinalis, H. orientalis, H. verbana), with proteomic validation of the salivary cell secretion and a draft H. medicinalis genome. Differential expression analysis found 102, 174 and 72 salivary-cell transcripts in the three species respectively, grouped into 25 orthologous clusters shared by all three species (44 shared by at least two). Proteomics identified 189 (H. medicinalis), 86 (H. orientalis) and 344 (H. verbana) proteins in the secretion, with 39 orthologous clusters shared by all three species. Well-known anticoagulants such as hirudin, bdellins, eglins, saratins and destabilases were not differentially expressed between salivary cells and muscle.
Babenko VV et al. · BMC Genomics
Tiefgehende Profile bioaktiver Makromoleküle in Speichelsekreten von Blutegeln, ermittelt durch Kombination von Proteom- und Transkriptomdaten der Speicheldrüsen
Aus kombinierten Proteom- und Transkriptomdaten der Speicheldrüsen von Blutegeln wurden 434 vollständige Proteinsequenzen abgeleitet. 44 Proteine und 221 Transkripte bioaktiver Moleküle waren an Saugprozessen beteiligt; laut Genexpressionsanalyse spielten zwei Drittel der bioaktiven Gene eine Schlüsselrolle im Bissprozess und waren mit Höhlenlebensräumen assoziiert. Nach Ansicht der Autoren kann die Behandlungseffizienz je nach saugender Egelart variieren; die kombinierte Hochdurchsatz-Proteomik und -Transkriptomik sei geeignet, niedrig konzentrierte Sekretproteine zu erfassen, und die Befunde böten eine Grundlage für künftige pharmakologische Wirkstoffe oder Zielstrukturen.
Liu Z, Tong X, Su Y et al. · Journal of proteomics
Proteomische Analysemethoden zur Charakterisierung von Proteinen aus den Speicheldrüsensekreten des medizinischen Blutegels in verschiedenen Jahreszeiten
Proteomische Analysen der Speicheldrüsensekrete von Hirudo medicinalis im Sommer und Winter zeigten jahreszeitliche Unterschiede der Proteinverteilung bei gleichem Positionsmuster (2D-SDS-PAGE: 15 bis 250 kD; SELDI-MS: 2–10 und 10–60 kD). In der hochmolekularen Fraktion detektierte MALDI-TOF-MS 32 (Sommer) bzw. 20 (Winter) Proteine, weniger als 20 % des Gesamtproteins. Für 12 Proteine wurden N-terminale Sequenzen bestimmt; bekannte Proteine fanden sich nicht. Autoren zufolge spricht dies für viele neue Proteine und korreliert mit den klinischen Effekten der Hirudotherapie, deren Mechanismen unklar bleiben.
Baskova IP et al. · Biochemistry. Biokhimiia
Protein-Lipid-Partikel des Speicheldrüsensekrets des medizinischen Blutegels; ihre Größe und Morphologie
Elektronenmikroskopische und biochemische In-vitro-Studie zu Größe, Morphologie und Lipid-Protein-Verteilung in Protein-Lipid-Partikeln (PLP) des Speicheldrüsensekrets (SGS) von Hirudo medicinalis. Raster- und Transmissionselektronenmikroskopie zeigten Partikel unterschiedlicher Größe und Form, bestätigt durch konfokale Lasermikroskopie nach FITC-Behandlung; nach Inkubation mit Brij 35 und Tween 20 zerfielen die PLP mit Anstieg der freien Proteinkonzentration. Perylen-Sonden zeigten Lipide hauptsächlich im Inneren der PLP; Cholesteryl-Bodipy wies Cholesterol nach. Nach Gefrieren bei -70 °C entstanden zahlreiche ähnliche kleine Partikel, deren Verteilung der Struktur von Wasserkristallen glich.
Baskova IP et al. · Biochemistry. Biokhimiia
Hungerinduzierte Veränderungen im Proteom und Transkriptom der Speicheldrüsen des Blutegels (Hirudo nipponia)
Hirudo nipponia ist ein wichtiges Heiltier in China; seine Speicheldrüsensekrete enthalten bioaktive Proteine. Illumina-RNA-Seq ergab im Speicheldrüsengewebe hungernder (D30) und gefütterter Blutegel (D0) 2 650 differenziell exprimierte Gene (DEGs). Die markierungsfreie Proteomik identifizierte 2 021 Proteine, davon 181 zwischen beiden Zuständen differenziell exprimiert (72 signifikant hoch-, 109 signifikant herunterreguliert). Nach 30 Tagen Hunger synthetisierten die Speicheldrüsen proteinbasierte Wirkstoffe und drosselten Atmung und Stoffwechsel, um Energie zu sparen; Glykolyse und Citratzyklus lieferten Energie für die Synthese von Substanzen wie Antibiotika.
Cai M, Shen H, Xing Y, Wang W, Guan F, Luo Y · PLoS one
Verwandte Ressourcen
Wissenschafts-Hub
Übersicht des SGS-Forschungsfeldes.
Hämostase & Gerinnung
Antikoagulatorische Mechanismen im Detail.
Proteinase-Inhibitoren
Profile von 14 charakterisierten Inhibitoren.
Neurotrophe Effekte
Destabilase, Bdelline und neurale Reparatur.
Bivalirudin
Vom Blutegel-Hirudin zum FDA-zugelassenen Medikament.
Blutegelextrakte & Piyavit
Orale Arzneimittelentwicklung.