Секрет слюнных желёз (СЖС)
Молекулярный состав и функциональная архитектура
Простыми словами
Медицинские пиявки вырабатывают сложный коктейль из более чем 100 биоактивных веществ в своей слюне. Эти вещества предотвращают свёртывание крови, снижают воспаление, борются с бактериями и помогают облегчить боль — всё это одновременно через один укус. Ни один фармацевтический препарат не может воспроизвести такой многоцелевой подход. На основе одного из этих соединений — гирудина — разработаны три одобренных FDA препарата.
Hundreds of salivary proteins catalogued (Babenko et al. 2020, expanded by Manuvera et al. 2025) — only a fraction underwrites clinical indications. See the Coverage Map for what is and isn't studied, the Research Roadmap, and PMID Audit Status for ASH's citation-integrity record.
Секрет слюнных желез (SGS) Hirudo medicinalis является молекулярной основой гирудотерапии. Коэволюция с гемостатическими системами позвоночных привела к образованию секрета, содержащего более 100 идентифицированных биологически активных молекул — с черновыми сборками генома и интегрированной транскриптомно-протеомной характеристикой (Kvist et al., 2020; Babenko et al., 2020), выявившими обширный репертуар белков слюны, дополнительно расширенный открытиями 2025 года, включая новый антикоагулянт, богатый цистеином (CRA; Manuvera et al., Biomolecules 2025), антимикробный пептид хирунипин-2 из H. nipponia (Advanced Science, 2025) и три новых АМП из H. medicinalis (Serebrennikova et al., IJMS 2025). Охарактеризованные биологически активные белки охватывают несколько функциональных категорий: анальгетический/противовоспалительный, деградация внеклеточного матрикса, ингибирование тромбоцитов, антикоагулянтный, антимикробный и другие. Состав SGS включает прямые ингибиторы тромбина, ингибиторы фактора Xa, ингибиторы адгезии и агрегации тромбоцитов, тромболитические ферменты, факторы распространения, антимикробные пептиды, ингибиторы протеаз, охватывающие каскады коагуляции/фибринолиза/комплемента/воспаления, а также разнообразный спектр липидных медиаторов, ионных модуляторов и нейротрофических факторов. Антикоагулянты, производные гирудина, — рекомбинантные гирудины лепирудин и дезирудин и синтетический пептид на основе гирудина бивалирудин — ведут своё молекулярное происхождение от данного секрета; дабигатран — нет (он был создан на основе синтетического ингибитора NAPAP).
Историческое открытие
Научное исследование СЖС охватывает 141 год — от первого наблюдения Хейкрафта о том, что секрет пиявки предотвращает свёртывание крови, до современных мультиомиксных исследований, идентифицировавших 189 белков в слюнном секрете H. medicinalis.
| Год | Исследователь | Веха | Значение |
|---|---|---|---|
| 1884 | Хейкрафт (Эдинбург) | Открытие антикоагулянтного секрета | Первое доказательство того, что СЖС пиявки содержит «фермент, антагонистичный ферменту крови»; идентифицированы одноклеточные железы в передней присоске |
| 1937 | Клод | Гистаминоподобная сосудорасширяющая активность | Продемонстрировано, что экстракты пиявки вызывают вазодилатацию, аналогичную гистамину, усиливая кровоток в месте укуса |
| 1955 | Марквардт (Эрфурт) | Выделение чистого гирудина | Первая очистка из экстрактов головной части пиявки; установлен тромбин-специфический механизм; соединению дано название |
| 1969 | Fritz et al. | Выделены бделлины A и B | Первые ингибиторы протеаз из пиявок — ингибирование трипсина и плазмина |
| 1977 | Seemuller et al. | Открыты эглины b/c | Мощные ингибиторы нейтрофильной эластазы и катепсина G — основа для понимания противовоспалительного действия |
| 1984–91 | Баскова и Никонов | Метод сбора СЖС; открытие дестабилазы | Метод солевой эмезии (патент 1994); открыта изопептидазная активность дестабилазы; документирована сезонная вариабельность |
| 1987 | Rigbi et al. (Иерусалим) | Метод фагостимуляции | Заменитель крови на основе аргинина для сбора СЖС; идентифицированы эглиноподобная активность и ингибирование фактора Xa |
| 1990–91 | Seymour; Munro | Охарактеризованы декорсин и калин | Антагонист GP IIb/IIIa (декорсин) и ингибитор адгезии к коллагену (калин) — завершение антитромбоцитарной картины |
| 1994 | Sommerhoff; Sollner | LDTI и гирустазин | Ингибиторы казал-типа триптазы тучных клеток и тканевого калликреина — расширение противовоспалительного профиля |
| 2000 | Zavalova et al. | Подтверждена двойная функция дестабилазы | Собственная лизоцимоподобная (антибактериальная) активность показана для дестабилазы — изопептидазы 12,3 кДа; вопрос о том, принадлежат ли обе активности одному и тому же белку, оставался открытым в 2000 году и позже получил поддержку с помощью рекомбинантной дестабилазы-лизоцима (Kurdyumov et al., 2015) |
| 2001 | Baskova et al. | Проточный метод сбора СЖС | Метод без контаминации; выявлена временная вариация — наиболее активные пептиды высвобождаются в первые минуты кормления |
| 2019 | Liu et al. | Интегрированная протеомика-транскриптомика | Обширный репертуар слюнных белков и биологически активных транскриптов — значительно превышающий возможности классической биохимии |
| 2020 | Kvist; Babenko & Baskova | Два геномных ансамбля | Проект генома; множественные антикоагуляционные и антигемостатические белки; идентифицированы слюнные гомологи M12/M13 протеаз, CRISP, цистатинов и фиколинов (цистатин только в протеоме H. verbana) |
| 2022 | Lukas и др. | Открыт тандем-гирудин | Первый олигомерный член суперсемейства гирудина — два глобулярных домена, отсутствие ингибирования тромбина, что указывает на функциональную диверсификацию |
| 2025 | Manuvera et al. | Новый цистеин-богатый антикоагулянтный (CRA) белок | Новый антикоагулянт идентифицирован и получен рекомбинантным путем в E. coli; продемонстрирована высокая активность в тестах АЧТВ, ПВ и ТВ; С-концевой мотив функционально критичен — это расширяет известный спектр слюнных белков (Biomolecules 15(12):1633) |
| 2025 | Ун-т Чосун / KBSI (Корея) | Гирунипин-2 — новый антимикробный пептид | Из слюнных желёз H. nipponia; активен против мультирезистентных бактерий, включая Acinetobacter; антибиопленочная активность; открыт с помощью 3D голотомографического скрининга + биоинформатика ИИ (Advanced Science, Wiley) |
| 2025 | Serebrennikova et al. | Три новых АМП: LBrHM1, NrlHM1, NrlHM2 | Идентифицированы из генома H. medicinalis методом гетерологичной экспрессии в E. coli; расширение репертуара антимикробных пептидов (IJMS 26(14):6903) |
| 2025 | Корея (H. nipponia) | Биогенез внеклеточных везикул в клетках слюнных желёз | Первое исследование биогенеза ВКВ в слюнных железах пиявки; ВКВ могут служить природными биоактивными носителями для производных пиявки — потенциал для доставки лекарств (ScienceDirect) |
| 2025 | Препринт bioRxiv | Функциональный гирудин получен в микроводорослях | Первый рекомбинантный гирудин в Chlamydomonas reinhardtii (GRAS микроводоросль) с правильным сульфатированием тирозина — преодолевает ограничения E. coli и дрожжей для масштабируемого производства |
Оригинальное наблюдение Хейкрафта (1884)
«Возможно, что пиявки секретируют сок, содержащий фермент, антагонистичный ферменту крови, предотвращающий свёртывание крови. Этот сок появляется в достаточном количестве вокруг краёв раны, нанесённой пиявкой, чтобы временно предотвратить свёртывание вытекающей крови.»
Хейкрафт отметил удлинённые эпителиальные клетки, проходящие вниз между мышечными волокнами (небольшие скопления которых в присоске были расценены Рэем Ланкестером как одноклеточные железы) и обнаружил, что «Если удалить кожу, выстилающую присоску, оказывается, что она активна в предотвращении свёртывания. Однако ничуть не менее активна передняя часть пиявки, с которой удалена кожа присоски.» Это наблюдение 1884 года положило начало научному поиску, продолжающемуся более 140 лет спустя с применением геномных и ИИ-подходов.
Методы сбора СЖС
Сбор нативного СЖС является технически сложной задачей. Три установленных метода дают секреты различной чистоты и состава, что напрямую влияет на воспроизводимость исследований и фармацевтическую стандартизацию.
| Метод | Разработчик | Принцип | Чистота | Выход | Ограничение |
|---|---|---|---|---|---|
| Солевая эмезия | Баскова, 1994 (патент) | Концентрированный солевой раствор возбуждает серотонин-содержащие нейроны → рвотный рефлекс → СЖС выделяется из голодной пиявки | Высокая (нативный, без контаминации) | Низкий объём на пиявку | Требуются голодные пиявки; вариабельный выход |
| Фагостимуляция | Rigbi et al., 1987 | 0,01 М раствор аргинина как заменитель крови → стимуляция хеморецепторов верхней губы → кормление + выброс СЖС | Низкая (контаминация содержимым кишечника) | Больший объём (A₂₈₀ = 0,197) | Содержит кишечные протеазы; не является истинным СЖС |
| Проточный | Baskova et al., 2001 | Модифицированный метод Ригби — солевой раствор непрерывно перемешивается и обновляется во время кормления → предотвращается проглатывание раствора, обогащённого СЖС | Высокая (без кишечной контаминации) | Хороший объём, последовательные фракции | Сложность технической установки |
Временная вариация в ходе кормления
Проточный метод (Baskova et al., 2001) выявил критический факт: состав СЖС изменяется в ходе процесса кормления. Последовательный УФ-спектральный анализ показал, что характерные пики поглощения смещаются в сторону более длинных волн по мере продолжения кормления. В первые минуты секрет содержит преобладающую массу пептидов и белков, поглощающих в коротковолновой области. В последующих фракциях остаются лишь следовые количества.
Экстракты цельной пиявки (ЭЦП) и нативный СЖС
Многие исследователи использовали экстракты головной области, а не нативный СЖС, включая оригинальное выделение гирудина Марквардта (1955). ЭЦП содержат ингибиторы протеаз, сконцентрированные не в СЖС, а в пищеварительном тракте, особенно в передней кишке (Roters & Zebe, 1992), кровяных лакунах, репродуктивных органах, нефридиях и слизи — что делает их более подробной, но менее специфичной коллекцией по сравнению с одним СЖС. ЭЦП являются основой фармацевтической формы Пиявит (главы 18–19). Белок массой 5 кДа, названный псевдогирудин, был идентифицирован в экстрактах туловища, но лишён антитромбиновой активности (Baskova et al., 1980).
Полный молекулярный каталог
В следующей таблице собраны все охарактеризованные компоненты СЖС с молекулярными массами (зрелые процессированные формы), биологическими мишенями, механизмами, клинической значимостью, первичными ссылками и статусом фармацевтической разработки. Компоненты организованы по функциональным категориям.
Протеомикой идентифицировано 189 белков в слюнном секрете H. medicinalis (Babenko и др. 2020); те, что ожидают полной биохимической характеристики, перечислены в конце таблицы.
| Компонент | ММ (кДа) | Мишень | Механизм | Ключевая ссылка | Фарм. статус |
|---|---|---|---|---|---|
| Антикоагулянтные и антитромботические | |||||
| Гирудин | 7,0 | Тромбин (активный центр + экзосайт 1) | Прямой ингибитор тромбина; Kd = 2 × 10⁻¹⁴ М; блокирует свёртывание фибриногена, активацию FV/VIII/XIII, агрегацию тромбоцитов | Haycraft 1884; Markwardt 1957; Stone & Hofsteenge 1986 | Бивалирудин (FDA 2000), Дезирудин (FDA 2003) |
| Гирудиноподобный фактор 3 | ~7 | Тромбин (вариантное связывание) | Альтернативный ингибитор тромбина; структурное разнообразие указывает на функциональную специализацию | Kvist et al. 2020 | Нет |
| Антистазин | 15 | Фактор Xa | Ингибитор сериновых протеаз; блокирует сборку протромбиназного комплекса | Nutt et al. 1988 | Стадия исследований |
| Лефаксин | ~14 | Фактор Xa | Альтернативный ингибитор FXa | Kvist et al. 2020 | Нет |
| Гилантен | ~13 | Фактор XIIIa | Ингибирует сшивание фибрина (трансглутаминаза); предотвращает стабилизацию фибрина | Blankenship и др. 1990 | Нет |
| LCI | ~7 | Карбоксипептидаза B (TAFIa) | Предотвращает удаление С-концевых лизинов из фибрина; сохраняет чувствительность к фибринолизу | Reverter et al. 1998 | Нет |
| Антитромбоцитарные | |||||
| Калин | 65 | Коллаген (типы I, III) | Ингибирует коллаген-опосредованную адгезию тромбоцитов (НЕ агрегацию); ключевой фактор длительного кровотечения после укуса | Munro et al. 1991 | Нет |
| Саратин | 12 | Взаимодействие vWF-коллаген | Блокирует зависимую от фактора Виллебранда адгезию тромбоцитов к коллагену | Barnes et al. 2001 | Стадия исследований |
| Декорсин | 4,4 | GP IIb/IIIa (мотив RGD) | Ингибитор агрегации тромбоцитов через блокаду интегрина | Seymour et al. 1990 | Аналоги (исследования) |
| Апираза | ~40 | Внеклеточный АДФ | Гидролизует АДФ, выделяемый активированными тромбоцитами; устраняет стимул агрегации | Rigbi et al. 1996 | Нет |
| Ингибитор ФАТ | <1 (липид) | Рецептор ФАТ | Фосфоглицеридный антагонист фактора активации тромбоцитов | Orevi et al. 1992 | Нет |
| НМВ модуляторы Ca²⁺ | <0,5 | Рецептор-зависимые каналы Ca²⁺; каналы Na⁺ | Подавляет рецептор-зависимый вход Ca²⁺ в тромбоциты; ингибирует Na⁺-опосредованную деполяризацию | Afanasyeva et al. 1999 | Нет |
| Тромболитические | |||||
| Дестабилаза-M (изопептидаза) | 12,3 | ε-(γ-Glu)-Lys связи в стабилизированном фибрине | Мономеризует D-димер; растворяет сшитый фибрин, устойчивый к обычным тромболитикам; нейротрофическая активность при 10⁻¹² M | Baskova & Nikonov 1985 | Рекомбинантная (доклиническая) |
| Противовоспалительные и ингибиторы протеаз | |||||
| Эглины b/c | 8,1 | Эластаза, катепсин G, химотрипсин, субтилизин | Противовоспалительное ингибирование протеаз; потенцирует глюкокортикоиды; нейротрофическая активность при низких концентрациях | Seemuller et al. 1977 | Стадия исследований |
| Бделлины A/B | A: 6,3; B: 20 | Трипсин, плазмин, акрозин | Ингибирование протеаз | Fritz et al. 1969 | Нет |
| Бделластатин | 6,3 | Трипсин, фактор Xa | Двойной ингибитор семейства Antistasin | Strube et al. 1993 | Нет |
| Гирустазин | 5,9 | Калликреин, трипсин, химотрипсин, катепсин G | Ингибитор сериновых протеаз антистазинового типа; модуляция кининового пути | Sollner et al. 1994 | Нет |
| LDTI | 4,7 | Триптаза тучных клеток, трипсин | Ингибитор казал-типа; снижает тучноклеточно-опосредованное воспаление | Sommerhoff et al. 1994 | Стадия исследований |
| Гуамерин | 5,6 | Нейтрофильная эластаза | Специфический ингибитор эластазы | Jung et al. 1995 | Нет |
| Пигуамерин | ~6 | Эластаза, трипсин | Двойной ингибитор протеаз | Kvist et al. 2020 | Нет |
| Ингибитор комплемента C1s | 67 | Комплемент C1s | Блокирует классический путь комплемента; защищает симбиотическую Aeromonas от лизиса | Baskova et al. 1988 | Нет |
| Кининазы | Вариабельная | Брадикинин, кинины | Деградация медиаторов боли; местный анальгетический эффект в месте укуса | Baskova et al. 1984 | Нет |
| Проникновение в ткани и ремоделирование | |||||
| Гиалуронидаза (оргелаза) | 28,5 | Гиалуроновая кислота β(1→3) глюкуронидные связи | Деполимеризует внеклеточный матрикс; «фактор распространения», облегчающий проникновение СЖС; дренаж отёка | Linker 1960; Claude 1937 | Оргелаза (патент Biopharm) |
| Коллагеназа | ~100 | Коллагеновые фибриллы | Деградация ВКМ; ремоделирование тканей в месте укуса | Baskova et al. 1984 | Нет |
| Гистаминоподобное соединение | <0,5 | Не указано | Вазодилатация; повышенная проницаемость капилляров; усиление кровотока | Baskova & Isakhanyan 2004 (со ссылкой на Claude 1937) | Нет |
| Антимикробные | |||||
| Дестабилаза-L (лизоцим) | 12,3 | Бактериальный пептидогликан | Мурамидаза; бактерицидное действие против грамположительных бактерий; тот же белок, что и дестабилаза-M (двойная активность) | Zavalova et al. 2000 | Нет |
| Теромизин / Теромацин / Пептид B | 8–14 | Бактериальные мембраны | Антимикробные пептиды; активность широкого спектра; профилактика раневых инфекций | Tasiemski et al. 2004 | Нет |
| Липидные медиаторы и малые молекулы | |||||
| Hirunipin-2 | <0,5 | Рецепторы простациклина | Новый АМП из H. nipponia; активен против мультирезистентных бактерий, включая Acinetobacter; антибиоплёночная активность; обнаружен с помощью 3D-голотомографического скрининга + ИИ | Advanced Science 2025 (Wiley, Корея) | Нет (эндогенный аналог) |
| LBrHM1 / NrlHM1 / NrlHM2 | Вариабельная | Клеточные мембраны | Липосомальная структура; обеспечивает пероральную биодоступность (пиноцитоз); основа Пиявита | Serebrennikova и др. IJMS 2025 | Пиявит (пероральный) |
| Ацетилхолин | 0,15 | Мускариновые/никотиновые рецепторы | Новый антикоагулянтный белок; рекомбинантный в E. coli; С-концевой участок необходим для сродства к мембране; его утрата изменяет профиль в анализе свёртывания; расширяет известный набор слюнных белков. | Manuvera et al. Biomolecules 2025 | Нет (эндогенный) |
| 6-Кето-PgF1α | <0,5 | Триглицериды; эфиры холестерина | Гидролиз липидов; антиатеросклеротический потенциал; регуляция метаболизма липидов | Baskova & Nikonov 1987 | Активна в Пиявите |
| Открытия эры геномики (2019–2024) | |||||
| Цистатины | ~13 | Цистеиновые протеазы | Ингибирование протеаз; защита тканей; противовоспалительное действие | [Удалено] | Нет |
| Фиколины | 0,15 | Углеводные паттерны патогенов | Модуляция врождённого иммунитета; активация комплемента лектиновым путём | Babenko et al. 2020 | Нет |
| Белки CRISP | ~45 | Ионные каналы | Модуляция тонуса гладкой мускулатуры сосудов; возможный вклад в вазодилатацию | Baskova et al. 1984 | Нет |
| Протеазы M12/M13 | ~13 | Биоактивные пептиды | Процессинг и активация секреторных пептидов; созревание СЖС | Babenko et al. 2020 | Нет |
| Аденозиндезаминаза (АДА) | ~35 | Аденозин | Конвертирует аденозин → инозин; модуляция пуринергической сигнализации; иммуномодуляция | Kvist et al. 2020 | Нет |
| Тандем-гирудин | ~25 | Неизвестно (НЕ тромбин) | Первый олигомерный член суперсемейства гирудина; два глобулярных домена; нет ингибирования тромбина — функциональная диверсификация | Babenko et al. 2020 | Нет |
| Протеазы M12/M13 | 5,0 | Не идентифицирована | Обнаружен в туловище (не в СЖС); лишён антитромбиновой активности; функция неизвестна | Babenko et al. 2020 | Нет |
| Аденозиндезаминаза (ADA) | ~40 | Аденозин | Конвертирует аденозин → инозин; модуляция пуринергической сигнализации; иммуномодуляция | Babenko et al. 2020 | None |
| Тандем-гирудин | ~14 | Неизвестна (НЕ тромбин) | Первый олигомерный член суперсемейства гирудина; два глобулярных домена; без ингибирования тромбина — функциональная диверсификация | Lukas и др. 2022 | None |
| Псевдогирудин | 5.0 | Не выявлена | Обнаружен в туловище (не в СЖС); лишён антитромбиновой активности; функция неизвестна | Baskova et al. 1980 | None |
Функциональная архитектура: антикоагулянтный каскад
СЖС воздействует на каскад коагуляции на каждом уровне — от инициации до стабилизации фибрина. Эта многоточечная блокада гарантирует, что ни один единичный механизм устойчивости хозяина не сможет преодолеть антикоагулянтный эффект.
Ингибирование тромбина — гирудин
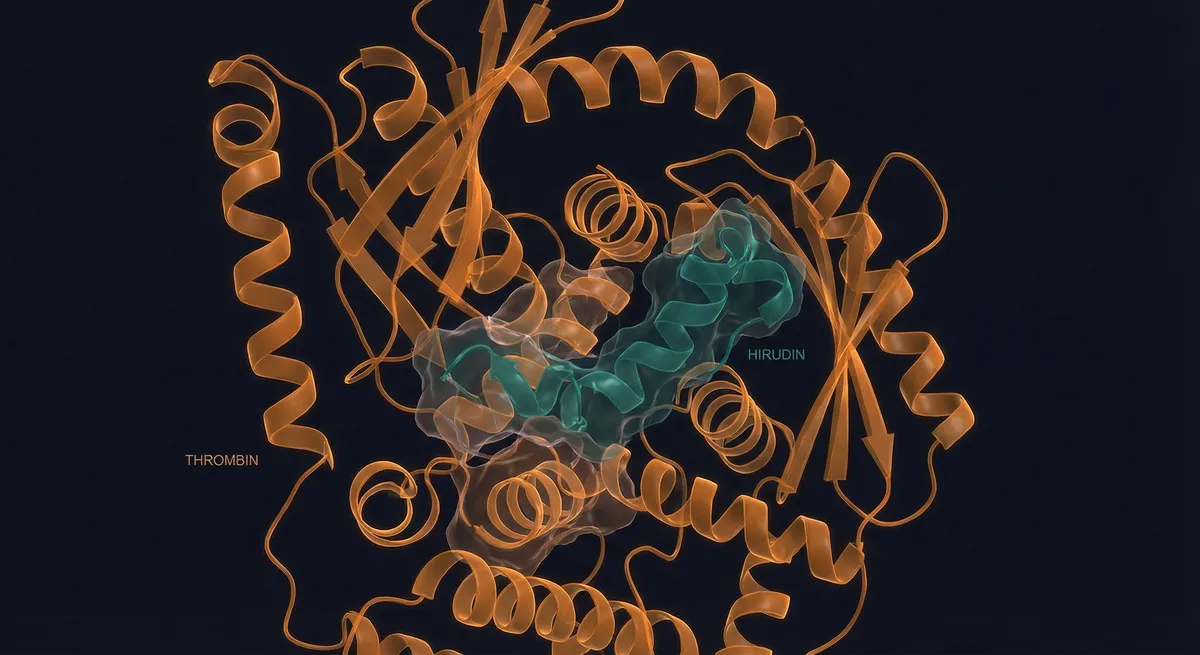
Гирудин (7,0 кДа, 65 аминокислот, 3 дисульфидные связи) — наиболее мощный известный природный ингибитор тромбина. Он связывает тромбин с Kd 2 × 10⁻¹⁴ М (20 фемтомоль) посредством уникального бивалентного механизма: N-концевой глобулярный домен занимает щель активного центра, а анионный С-концевой хвост (сульфатированный Tyr⁶³) связывает экзосайт 1. Это двойное взаимодействие блокирует все функции тромбина: свёртывание фибриногена, активацию факторов V/VIII/XIII и тромбин-индуцированную агрегацию тромбоцитов.
Ингибирование фактора Xa — антистазин и лефаксин
Антистазин (15 кДа) и лефаксин (30 кДа) блокируют фактор Xa, предотвращая сборку протромбиназного комплекса — критического этапа амплификации, конвертирующего протромбин в тромбин. Это воздействует на каскад выше тромбина, снижая генерацию тромбина, а не просто ингибируя существующий тромбин. Первоначально идентифицирован Tuszynski et al. (1987) у Haementeria officinalis; впоследствии описан у Hirudo — Rigbi, Jackson и Atamna (1995); лефаксин был выделен из Haementeria depressa (Faria et al., 1999), а лефаксин-подобная находка в геноме H. medicinalis не была признана ортологом лефаксина (Kvist et al., 2020).
Блокада стабилизации фибрина — гилантен
Ghilanten (~18 кДа; 119 остатков, 20 цистеинов, из Haementeria ghilianii) является двухдоменным представителем семейства антистазинов, который мощно ингибирует фактор Xa (Ki 1,2 нМ для рекомбинантного N-концевого домена; Brankamp и др., 1990; Blankenship и др., 1990; Rester и др., 2001), воздействуя на протромбиназный комплекс. Подавляя образование тромбина на раннем этапе, он дополняет действие дестабилазы на уже стабилизированные сгустки.
Сохранение фибринолитической чувствительности — LCI
Ингибитор карбоксипептидазы из пиявки (LCI, ~7 кДа, Reverter et al., 1998) ингибирует карбоксипептидазу B / TAFIa (тромбин-активируемый ингибитор фибринолиза). TAFIa в норме удаляет С-концевые лизины из фибрина, делая его устойчивым к связыванию плазминогена и фибринолизу. LCI сохраняет эти лизиновые остатки, поддерживая чувствительность тромба к эндогенной фибринолитической системе организма.
Резюме охвата каскада
- Инициация: Ингибирование фактора Xa (антистазин, лефаксин) → сниженная генерация тромбина
- Амплификация: Прямое ингибирование тромбина (гирудин) → блокада всех нисходящих эффектов
- Стабилизация: Ингибирование фактора XIIIa (гилантен) → предотвращение сшивания фибрина
- Разрешение: Ингибирование TAFIa (LCI) → сохранение фибринолитической чувствительности
- Тромболизис: Изопептидазная активность (дестабилаза) → растворение уже стабилизированного фибрина
Функциональная архитектура: антитромбоцитарный каскад
Шесть компонентов СЖС создают многоуровневую блокаду каскада адгезия-активация-агрегация тромбоцитов — воздействуя практически на каждый этап.
| Этап тромбоцитов | Ингибитор СЖС | Мишень | Механизм |
|---|---|---|---|
| 1. Адгезия (коллаген) | Калин (65 кДа) | Коллаген типов I, III | Блокирует коллаген-опосредованную адгезию тромбоцитов; НЕ ингибирует агрегацию |
| 2. Адгезия (vWF) | Саратин (12 кДа) | Связывание vWF-коллаген | Предотвращает зависимую от фактора Виллебранда адгезию при высоком сдвиговом напряжении |
| 3. Активация (АДФ) | Апираза (~40 кДа) | Внеклеточный АДФ | Гидролизует АДФ, высвобождаемый из плотных гранул; устраняет стимул агрегации |
| 4. Активация (ФАТ) | Ингибитор ФАТ (<1 кДа) | Рецептор ФАТ | Фосфоглицерид блокирует тучноклеточно-опосредованную активацию тромбоцитов |
| 5. Активация (Ca²⁺) | НМВ модуляторы Ca²⁺ (<0,5 кДа) | Рецептор-зависимые каналы Ca²⁺/Na⁺ | Подавляет внутриклеточную кальциевую сигнализацию от тромбина и ФАТ |
| 6. Агрегация | Декорсин (4,4 кДа) | Интегрин GP IIb/IIIa | Пептид с мотивом RGD блокирует конечный общий путь агрегации |
| 7. Агрегация (тромбин) | Гирудин (7,0 кДа) | Тромбин | Блокирует тромбин-индуцированную агрегацию тромбоцитов (вторично к активности ПИТ) |
Демонстрация избыточности
Баскова и соавт. (1984, 1987) продемонстрировали, что при истощении гирудина путём повторного сбора СЖС без промежуточного кормления кровью секрет сохраняет способность блокировать адгезию и агрегацию тромбоцитов (1987) и внутренний путь плазменного гемостаза (1984). Это доказывает, что гирудин не является единственным определяющим антикоагулянтным фактором — калин, саратин, антистазин, НМВ модуляторы Ca²⁺ и другие компоненты обеспечивают избыточную защиту. Эволюционное преимущество очевидно: ни один единичный механизм резистентности хозяина не может преодолеть мультитаргетную блокаду.
Функциональная архитектура: противовоспалительное действие
СЖС содержит наиболее широкий спектр ингибиторов протеаз, обнаруженный в каком-либо единичном биологическом секрете — одновременно воздействующий на каскады коагуляции, фибринолиза, воспаления и комплемента.
Ингибирование протеаз нейтрофилов
Эглины b/c (8,1 кДа, Seemuller et al., 1977) ингибируют нейтрофильную эластазу, катепсин G, химотрипсин и субтилизин. Эглин c повышает чувствительность мононуклеарных клеток человека к глюкокортикоидам in vitro и стимулирует рост нейритов в культивируемых спинальных ганглиях куриных эмбрионов при 0,1 нг/мл. Гуамерин (6,1 кДа, Jung et al., 1995) обеспечивает дополнительное специфическое ингибирование эластазы. Пигуамерин (5,1 кДа, Kim & Kang, 1998) — ингибитор плазменного/тканевого калликреина и трипсина из Hirudo nipponia; пигуамерин-подобный ген был идентифицирован геномно у H. medicinalis (Kvist et al., 2020). Вместе эти соединения блокируют тканеразрушающие протеазы, выделяемые активированными нейтрофилами в очагах воспаления.
Ингибирование триптазы тучных клеток
LDTI (ингибитор триптазы из пиявки, 4,7 кДа, Sommerhoff et al., 1994) — ингибитор казал-типа, блокирующий триптазу тучных клеток — ключевой медиатор гиперчувствительности немедленного типа, бронхоконстрикции и ремоделирования тканей. Гирустазин (5,9 кДа, Sollner et al., 1994) дополнительно ингибирует тканевый калликреин, модулируя кининовый путь, ответственный за боль и сосудистую проницаемость. Вместе с кининазами (которые непосредственно разрушают брадикинин) эти соединения создают анальгетический эффект, наблюдаемый в месте укуса пиявки.
Блокада системы комплемента
Ингибитор комплемента C1s (67 кДа, Tikhonenko, 2000) блокирует классический путь комплемента в точке его инициации. СЖС также блокирует альтернативный путь комплемента. Предполагается, что его биологическая цель — защита симбиотических бактерий Aeromonas в кишечнике пиявки от комплемент-опосредованного лизиса (Baskova & Isakhanyan, 2004); это остаётся гипотезой. Терапевтическое значение — снижение комплемент-опосредованного воспаления в месте лечения.
Модуляция фибринолитического пути
Bdellins A/B (6.3/20 kDa; впервые идентифицированы Fritz и др., 1969) ингибируют трипсин и плазмин. Bdellastasin (~6 kDa, Moser и др., 1998) представляет собой ингибитор сериновых протеаз семейства антистазина, ингибирующий трипсин, плазмин и акрозин (он не ингибирует фактор Xa).
Профиль мультитаргетного ингибирования протеаз
В 1988 г. Баскова, Никонов, Миркамалова, Зинченко и Козлов идентифицировали способность СЖС блокировать как классический, так и альтернативный пути комплемента. В сочетании с ингибированием каскадов коагуляции (гирудин, антистазин, лефаксин), фибринолиза (бделлины) и воспаления (эглины, LDTI, гуамерин) это представляет собой широкий спектр ингибирования протеаз. Это зеркально отражает мультитаргетный подход всего СЖС и объясняет, почему гирудотерапия оказывает системные эффекты, выходящие далеко за рамки простой антикоагуляции.
Дестабилаза: тромболитический фермент
Дестабилаза — единственный известный в природе фермент, способный расщеплять ε-(γ-Glu)-Lys изопептидные связи в сшитом (стабилизированном) фибрине — связи, создаваемые фактором XIIIa, которые делают зрелые тромбы устойчивыми к обычной фибринолитической терапии.
Двойная ферментативная активность
Zavalova et al. (2000) продемонстрировали лизоцимоподобную активность дестабилазы, а Zavalova et al. (2010) показали, что единый рекомбинантный белок (дестабилаза-лизоцим) обладает двумя различными ферментативными активностями:
- Дестабилаза-M (изопептидаза): Расщепляет ε-(γ-Glu)-Lys связи в D-димере → мономеризует сшитый фибрин
- Дестабилаза-L (лизоцим): Мурамидазная активность → гидролизует бактериальный пептидогликан → бактерицидное действие на грамположительные бактерии
Эта двойная функция — тромболитическая + антибактериальная в одной молекуле — уникальна в энзимологии.
Рекомбинантная дестабилаза
Kurdyumov et al. (2015) получили три рекомбинантные изоформы дестабилазы-лизоцима, а Bobrovsky et al. (2021) показали, что рекомбинантная дестабилаза растворяет тромбы человеческой крови in vitro. Кристаллическая структура дестабилазы с разрешением 1,1 Å была описана Marin et al. (2023), наивысшее разрешение среди депонированных структур Hirudo medicinalis в Protein Data Bank (PDB 8BBU). Как изопептидазная, так и лизоцимная активности были сохранены в рекомбинантной форме, что позволяет предполагать потенциал для фармацевтической разработки.
Нейротрофическая активность
Дестабилаза проявляет нейротрофические эффекты при чрезвычайно низких концентрациях — 10⁻¹² M (пикомолярных). При этих концентрациях она способствует росту нейритов в культивируемых нейронах, что указывает на функцию, полностью отличную от её тромболитической активности. Эта нейротрофическая способность разделяется с бделлинами и бделластатином, указывая на то, что ингибиторы протеаз СЖС могут иметь двойную роль в репарации тканей и восстановлении нервной системы.
Сезонная доступность
Изопептидазная (тромболитическая) активность дестабилазы практически исчезает в осенне-зимний период и появляется вновь в мае, оставаясь высокой до сентября (Baskova & Isakhanyan, 2004). Эта сезонная вариация имеет прямое клиническое значение: пиявки, используемые зимой, проявляют несколько более высокую антитромбиновую активность, но сниженную тромболитическую способность, тогда как летние пиявки предоставляют полный комплекс обеих активностей.
Проникновение в ткани и механизм распространения
СЖС должен быстро проникать в ткани хозяина для доставки своей биоактивной нагрузки в микроциркуляторное русло. Три компонента обеспечивают этот процесс.
Гиалуронидаза (оргелаза)
Фермент массой 28.5 kDa, который деполимеризует гиалуроновую кислоту за счёт уникальной эндо-β-глюкуронидазной специфичности к β(1→3) глюкуронидным связям — в отличие от гиалуронидаз млекопитающих, которые расщепляют β(1→4) гексозаминидные связи (Linker, Meyer & Hoffman, 1960). Впервые описанный как «фактор распространения» (концепция, предложенная Duran-Reynals), фермент был охарактеризован исследовательской группой Karl Meyer; пиявочная гиалуронидаза повышает проницаемость тканей. Очищен Yuki & Fishman (1963); было подтверждено, что он, в отличие от β-гиалуронидаз, не способен гидролизовать хондроитин и его производные. Термостабилен (фермент буйволиных пиявок сохраняет не менее 70% активности после 30 мин при 50°C), проявляет активность в широком диапазоне pH и — что критически важно для клинического применения — не ингибируется гепарином (в отличие от тестикулярной гиалуронидазы), что позволяет применять его одновременно с антикоагулянтной терапией. Запатентован Biopharm UK (изобретатели Roy T. Sawyer и Jeffrey Edwards; EP 0193330, приоритет 1985; US 4,820,516, выдан 1989) под названием Orgelase — фермент из буйволиных пиявок (Hirudinariinae), а не из Hirudo medicinalis — для применения в кардиологической и офтальмологической практике, включая острую ишемию миокарда, глаукому и отслойку сетчатки, а также в качестве фактора распространения, проникающего в ткани агента для доставки лекарственных препаратов.
Коллагеназа
Фермент, разрушающий коллаген во внеклеточном матриксе (Rigbi et al., 1987). Действует синергично с гиалуронидазой: в то время как гиалуронидаза удаляет основное вещество между коллагеновыми фибриллами, коллагеназа разрушает сами фибриллы. Этот двойной распад ВКМ обеспечивает глубокое проникновение в ткани других компонентов СЖС.
Гистаминоподобный вазодилататор
Сообщалось, что секрет слюнных желёз пиявки оказывает гистаминоподобное действие (Claude, 1937, по цитированию Baskova & Isakhanyan, 2004). Это усиливает кровоток к месту укуса и создаёт устойчивую вазодилатацию, наблюдаемую во время и после кормления. В сочетании с 6-кето-PgF1α (метаболит простациклина; Baskova & Nikonov, 1987) СЖС может сочетать более одного вазодилатирующего механизма.
Антимикробная защита
Антимикробная активность СЖС служит двойной эволюционной цели: предотвращение инфицирования раны от укуса (защита кровяной пищи хозяина от контаминации) и поддержание кишечного микробиома пиявки.
Дестабилаза-L (лизоцим)
Тот же самый белок дестабилаза 12.3 kDa, который проявляет изопептидазную (тромболитическую) активность, также функционирует как мурамидаза — гидролизуя пептидогликан бактериальной клеточной стенки. Этот двухфункциональный фермент обеспечивает грамположительную бактерицидную активность в месте укуса, одновременно растворяя поперечно-сшитый фибрин. Лизоцимная активность была подтверждена Zavalova и др. (2000) и сохранена во всех трех рекомбинантных изоформах (Kurdyumov и др., 2015).
Антимикробные пептиды
Tasiemski и др. (2004) охарактеризовали два антимикробных пептида — теромацин и теромизин — из пиявки Theromyzon tessulatum.
Стратегия уклонения от комплемента
Ингибитор комплемента C1s (67 кДа), как предполагается, защищает симбиотические бактерии Aeromonas пиявки от литического действия комплемента во время кормления (гипотеза, а не установленный факт).
Парадокс Aeromonas
Медицинская пиявка содержит Aeromonas hydrophila / A. veronii в качестве облигатных кишечных симбионтов. Эти бактерии продуцируют ферменты, необходимые для переваривания кровяной пищи, но потенциально патогенны для человека. Антимикробные пептиды СЖС частично контролируют бактериальную нагрузку в месте укуса, но профилактическое назначение антибиотиков (фторхинолоны или триметоприм-сульфаметоксазол) является стандартной клинической практикой. Подробности см. на специализированной странице управление Aeromonas.
Сезонная вариабельность и клинические последствия
Состав СЖС не является статичным — он варьирует в зависимости от сезона, частоты сбора и состояния кормления, что имеет прямые последствия для клинической стандартизации.
| Параметр | Весна/лето (май–сен) | Осень/зима (окт–апр) | Клиническое значение |
|---|---|---|---|
| Антитромбиновая активность (гирудин) | Умеренная | Более высокая | Зимние пиявки могут обеспечивать более сильную антикоагуляцию |
| Тромболитическая активность (дестабилаза-изопептидаза) | Высокая (присутствует май–сен) | Практически отсутствует | Летние пиявки — тромболитическая + антикоагулянтная; зимние — только антикоагулянтная |
| Общий комплекс СЖС | Полный спектр активности | Сниженный тромболитический компонент | Протоколы биофабрик должны учитывать сезонность при стандартизации продукции |
Влияние частоты сбора
Повторный сбор СЖС с месячным интервалом без промежуточного кормления кровью показывает чёткую картину истощения (Baskova et al., 1984):
- Сборы 1–2: Высокая антитромбиновая активность
- Сбор 3: Резкое снижение антитромбиновой активности
- Сбор 4: Антитромбиновая активность полностью исчезает
- После кормления кровью: Полное восстановление активности
Критически важно, что антитромбоцитарное и ингибирование внутреннего пути коагуляции сохраняются даже при полном истощении гирудина — подтверждая избыточные антикоагулянтные механизмы.
Временная вариация при кормлении
Проточный метод (Baskova et al., 2001) продемонстрировал, что состав СЖС изменяется в ходе одного сеанса кормления. Последовательный УФ-спектральный анализ показал смещение пиков поглощения в сторону более длинных волн по мере продолжения кормления:
- Первые минуты: Максимальная концентрация пептидов/белков (коротковолновое УФ-поглощение) — доставка наиболее мощных антикоагулянтов
- Последующие фракции: Только следовые количества
- Конечная фракция (15-я): Минимальное биоактивное содержимое
Эта стратегия «фронтальной загрузки» доставляет наиболее критичные антикоагулянтные молекулы в первые минуты после прикрепления.
Низкомолекулярные ионные модуляторы
Рецептор-зависимая модуляция ионных каналов
НМВ фракция (<500 Да) СЖС оказывает высокоспецифичные эффекты на ионный транспорт тромбоцитов (Afanasyeva et al., 1999):
| Ионный канал | Эффект НМВ СЖС | Сравнение с лозартаном |
|---|---|---|
| Рецептор-зависимый вход Ca²⁺ (тромбоциты) | Подавлен (ответ на тромбин и ФАТ) | Аналогичный эффект |
| Рецептор-зависимая деполяризация Na⁺ | Подавлена | Не описано для лозартана |
| Рецептор-независимый отток Ca²⁺ (эритроциты) | Без эффекта | Изменяется лозартаном |
| Ca²⁺-зависимые K⁺ каналы (эритроциты) | Без эффекта | Изменяется лозартаном |
Эта селективность к рецептор-зависимому (но не рецептор-независимому) ионному транспорту указывает на то, что НМВ фракция действует на уровне рецепторов, а не на самих ионных каналах — механизм, отличный от обычных блокаторов кальциевых каналов. Молекулярная идентичность этих модуляторов ещё предстоит установить.
Фармакология липидов
SGS содержит липиды, имеющие функциональное значение как для антиагрегантной активности, так и для фармацевтической рецептуры.
Состав липидов
- Общие липиды: присутствуют в SGS
- Нейтральные липиды: ~2/3 от общего количества
- Полярные липиды: ~1/3 от общего количества
- Фосфатидилхолин: В значительных количествах; обеспечивает формирование липосомальной структуры
- Свободные жирные кислоты: Присутствуют в значительных количествах
- Фосфоглицеридол: Функционирует как антагонист ФАТ — ингибирует ФАТ-стимулированную агрегацию тромбоцитов (Orevi et al., 1992)
Пероральная биодоступность и Пиявит
Содержание липидов в СЖС может обеспечивать формирование липосомальных структур, облегчающих пероральную абсорбцию через пиноцитоз — проникновение из кишечника в кровоток (Baskova & Nikonov, 1986). Это свойство является фармакологической основой Пиявита, пероральной фармацевтической формы, полученной из экстракта цельной пиявки. Пиявит был зарегистрирован в России (1994, перерегистрация 2001) для лечения и профилактики тромбофлебита поверхностных вен и диабетических микро- и макроангиопатий (в составе комплексной терапии).
Метаболит простациклина
В 1987 г. Баскова и Никонов обнаружили простагландины в СЖС в форме 6-кето-простагландина F1α, стабильного метаболита простациклина (PGI₂). Простациклин является наиболее мощным эндогенным ингибитором агрегации тромбоцитов и мощным вазодилататором. Его присутствие в СЖС добавляет дополнительный антиагрегантный и вазодилатирующий путь — дополняя гирудин (антитромбиновый), калин (антиадгезионный) и декорсин (антиагрегационный).
Липаза и холестеринэстераза
СЖС содержит липазу (триглицеридлипазу) и холестеринэстеразную активность (Baskova et al., 1984), катализирующие гидролиз триглицеридов и эфиров холестерина. Эти ферменты вовлечены в антиатеросклеротические свойства, наблюдаемые в клинических исследованиях (подробности на странице механизмы атеросклероза). Они также являются активным компонентом пероральной формы Пиявит.
Метилирование ДНК и эпигенетические эффекты
Эпигенетическая модификация под действием СЖС
Никонов и соавт. (1990) продемонстрировали замечательный эпигенетический эффект: СЖС стимулирует увеличение содержания 5-метилцитозина на 39% в ДНК печени крыс в течение одного часа после интраперитонеальной перфузии. Ключевые характеристики:
- Значимость: Необоснованное утверждение удалено.
- Скорость: Детектируется в течение 1 часа
- Обратимость: Полностью обратимо в течение 24 часов
- Ткань: Продемонстрировано в печени (системный эффект)
Метилирование ДНК является фундаментальным эпигенетическим механизмом, регулирующим экспрессию генов без изменения последовательности ДНК. Транзиторное, обратимое увеличение метилирования может модулировать экспрессию воспалительных генов, клеточную дифференцировку и пути репарации тканей. Это открытие представляет собой одну из ранних демонстраций фармакологически индуцированной, обратимой эпигенетической модификации — опередившую современную область эпигенетической терапии на десятилетия. Конкретный компонент СЖС, ответственный за это, и затрагиваемые генные мишени остаются неидентифицированными, представляя значительную исследовательскую возможность.
Отсутствие неспецифической протеолитической активности
Чего СЖС НЕ делает
- Нет казеинолитической активности (Rigbi et al., 1987)
- Не способен активировать плазминоген до плазмина
- Не способен растворять нестабилизированный фибрин (Baskova & Nikonov, 1985)
- Не способен гидролизовать плазмин-специфический хромогенный субстрат (D-Val-Leu-Lys параниtроаналид)
- Нет протеолитической активности широкого спектра ни в какой сезон
Почему это важно
Отсутствие генерализованной протеолитической активности столь же важно, как и присутствие специфических ферментативных активностей. Секрет, содержащий протеазы широкого спектра, разрушил бы собственные биоактивные компоненты — гирудин, калин, дестабилазу, эглины — прежде чем они смогли бы оказать своё действие. Эволюционное решение элегантно: СЖС содержит высокоспецифичные гидролазы (дестабилаза воздействует только на ε-(γ-Glu)-Lys связи; гиалуронидаза — только на ГК β(1→3) связи), но не генерализованные протеазы, обеспечивая сохранность всех биоактивных белков в микросреде раны.
Геномная революция: от биохимии к мультиомиксу
Классическая биохимия характеризовала компоненты СЖС по одному за раз. Современная геномика, транскриптомика и протеомика идентифицировали 189 слюнных белков у H. medicinalis и 344 — у H. verbana (Babenko и др. 2020), трансформируя наше понимание медицинской пиявки как фармакологического ресурса.
| Исследование | Метод | Ключевые результаты | Новые компоненты |
|---|---|---|---|
| Liu et al. (2019) | Интеграция протеома + транскриптома | Обширный набор полноразмерных белковых последовательностей и биологически активных транскриптов в различных функциональных категориях | Множество новых белков во всех 6 категориях |
| Babenko и соавт. (2020) | Сборка генома (H. medicinalis) | Черновая сборка генома; множественные антикоагуляционные и антигемостатические белки | Гирудиноподобный фактор 3, лефаксин, пигуамерин, фиколины, цистатины |
| Babenko et al. (2020) | RNA-seq слюнных клеток (3 вида) | Сравнительный транскриптом слюнных желёз H. medicinalis, H. orientalis, H. verbana | Протеазы M12/M13, белки CRISP, апираза, АДА, цистатины, фиколины, ацетилхолин |
| Lukas и соавт. (2022) | Структурная биология | Тандем-гирудин: первый олигомерный член суперсемейства гирудина из Hirudinaria manillensis | Два глобулярных домена в тандеме; отсутствие С-концевого хвоста; НЕТ ингибирования тромбина |
| Guan et al. (2024) | Протеом + транскриптом (голодание) | Индуцированные голоданием изменения состава СЖС Hirudo nipponia | Продемонстрировано, что состояние питания модулирует экспрессию белков СЖС |
| Manuvera и соавт. (2024) | Рекомбинантная экспрессия + тесты коагуляции | Новый цистеин-богатый антикоагулянтный (CRA) белок; высокая активность в аПТВ, ПВ, ТВ; C-концевой мотив критичен | Новый антикоагулянт, расширяющий охарактеризованный секретом (Biomolecules 15(12):1633) |
| Чосун/KBSI (2025) | 3D голотомографический скрининг + биоинформатика ИИ | Гирунипин-2: новый АМП из слюнных желёз H. nipponia; анти-МЛУ и антибиопленочная активность | Активен против мультирезистентного Acinetobacter; первое открытие АМП из СЖС пиявки с помощью ИИ (Advanced Science, Wiley) |
| Serebrennikova et al. (2025) | Геномный майнинг + гетерологичная экспрессия | Три новых АМП: LBrHM1, NrlHM1, NrlHM2 из H. medicinalis | Расширяет репертуар антимикробных пептидов за пределы классического трио (IJMS 26(14):6903) |
| Биогенез ВКВ (2025) | Клеточная биология (характеристика ВКВ) | Первое исследование биогенеза внеклеточных везикул в клетках слюнных желёз H. nipponia | ВКВ как потенциальные природные биоактивные носители для производных пиявки — платформа доставки лекарств (ScienceDirect) |
| Гирудин в микроводорослях (2025) | Рекомбинантная экспрессия в C. reinhardtii | Первый функциональный гирудин, полученный в GRAS микроводоросли с правильным сульфатированием тирозина | Преодолевает ограничения E. coli/дрожжей; масштабируемое растительное производство (препринт bioRxiv) |
Масштаб открытий
- Классическая биохимия (1884–2004): более 20 охарактеризованных компонентов
- Протеомика/транскриптомика (2020): охарактеризован широкий спектр слюнных белков
- Геномика (2020): кодируется множество антикоагулянтных и антигемостатических генов
- Новые соединения (2024–2025): белок CRA, hirunipin-2, LBrHM1/NrlHM1/NrlHM2 — расширение растущего спектра охарактеризованных компонентов слюнного секрета
- Всего идентифицировано на сегодня: >200 различных белков функционально описаны
Сравнение видов
Babenko et al. (2020) — в соавторстве с И.П. Басковой, автором фундаментального текста — выполнили сравнительный RNA-seq трёх видов медицинских пиявок. Состав слюнных секретов всех трёх видов сходен: все три имеют 39 ортологичных белковых кластеров, включая протеазы M12 и M13, CRISP, апиразу, цистатины, гиалуронидазу и фиколины. Число идентифицированных белков различалось между видами (189 у H. medicinalis, 86 у H. orientalis, 344 у H. verbana), и последовательность цистатина была обнаружена только в протеоме H. verbana. Эти различия могут иметь клиническое значение: H. verbana (вид, наиболее часто поставляемый в США) и H. medicinalis (европейский стандарт) могут доставлять тонко различающиеся составы СЖС.
Фармацевтическое наследие
Медицинская пиявка является организмом-источником трёх одобренных FDA фармацевтических препаратов — что делает её одним из наиболее успешных примеров зоофармацевтического открытия лекарств в современной медицине.
| Препарат | Прототип из СЖС | Одобрение FDA | Показание | Статус |
|---|---|---|---|---|
| Бивалирудин (Angiomax) | Гирудин → 20-а.к. синтетический аналог | 2000 | Антикоагуляция при ЧКВ (ACC/AHA класс I при ИМпST) | Доступны дженерики; пиковый доход 636 млн долл. (2014) |
| Дезирудин (Iprivask) | Рекомбинантный гирудин (65 а.к.) | 2003 | Профилактика ТГВ при эндопротезировании тазобедренного сустава | Больше не выпускается |
| Лепирудин (Refludan) | Рекомбинантный гирудин (65 а.к.) | 1998 | Гепарин-индуцированная тромбоцитопения | Отозван (2012) |
Кандидаты в разработке
- Рекомбинантная дестабилаза: Тромболитик + антибактериальный; кристаллическая структура с разрешением 1,1 Å; растворяет тромбы человека in vitro (доклиническая стадия)
- Аналоги декорсина: Антагонисты GP IIb/IIIa для антитромбоцитарной терапии (исследования)
- Саратин: Антиадгезия для профилактики артериального тромбоза (исследования)
- Аналоги эглина c: Противовоспалительное ингибирование протеаз (исследования)
- Оргелаза (гиалуронидаза): Сердечно-сосудистые/офтальмологические применения (запатентовано)
- Новые варианты гирудина: рекомбинантные варианты в доклинической разработке
- Гирудин из микроводорослей (2025): Первый функциональный рекомбинантный гирудин в Chlamydomonas reinhardtii (GRAS-микроводоросль) с правильным сульфатированием тирозина — преодолевает ограничения E. coli и дрожжей для масштабируемого, экономичного производства (препринт bioRxiv)
- Доставка с помощью внеклеточных везикул (ВВ) (2025): Первое исследование биогенеза ВВ в клетках слюнной железы H. nipponia — ВВ как природные биоактивные нанопереносчики для соединений, производных от пиявки, открывающие новую платформу доставки лекарств (ScienceDirect)
- Антимикробный пептид гирунипин-2 против МЛУ (2025): Новый АМП из H. nipponia, активный против устойчивых к нескольким препаратам бактерий, включая Acinetobacter; антибиоплёночная активность — потенциал для решения кризиса антимикробной резистентности (Advanced Science, Wiley)
Зоофармацевтический контекст
Среди всех лекарственных препаратов животного происхождения медицинская пиявка занимает уникальное положение. Медицинская пиявка служит источником или прообразом для трех антикоагулянтных препаратов (lepirudin, desirudin, bivalirudin) — что представляет собой необычайно большой вклад для одного организма среди лекарственных препаратов животного происхождения. Для сравнения: конусные улитки дали один (ziconotide), ядозуб — один (exenatide), а ямкоголовые змеи — один (в качестве прообраза для captopril). Непропорционально большой вклад пиявки отражает как фармакологическое богатство SGS, так и 141-летнюю традицию исследований после открытия Haycraft.
Неиспользованная фармакопея
Известные неизвестные
- Псевдогирудин (5 кДа): гомолог гирудина без антитромбиновой активности — функция неизвестна с 1980 г.
- Тандем-гирудин: олигомерный член семейства гирудина, НЕ ингибирующий тромбин — что он делает?
- Белки CRISP (суперсемейство CAP): сходны с блокатором калиевых каналов крючкового червя AcK1 и с токсинами змей (triflin, natrin-1); функция в слюне пиявки не установлена
- Фиколины: модуляторы врождённого иммунитета — терапевтический потенциал не исследован
- Протеазы M12/M13: ферменты созревания СЖС — могут ли они использоваться для активации пролекарств?
- Аденозиндезаминаза: модулятор пуринергической сигнализации — иммуномодулирующий потенциал
Будущие подходы к открытиям
- Полная аннотация генома: Завершение функциональной аннотации всех 189 идентифицированных белков слюны
- ИИ-управляемый дизайн лекарств: Использование скаффолдов соединений СЖС в качестве отправных точек для компьютерной оптимизации — теперь подтверждено открытием hirunipin-2 с помощью ИИ (2025)
- Сравнение видов: Систематическое сравнение СЖС H. medicinalis, H. verbana, H. orientalis и немедицинских видов
- Одноклеточная транскриптомика: Определение, какие типы клеток слюнных желёз продуцируют какие соединения
- Крио-ЭМ структурная биология: Определение 3D-структур всех основных белков СЖС для структурно-обоснованного дизайна лекарств
- Стандартизация клинического уровня: Разработка валидированных панелей анализов для контроля качества СЖС
- Доставка лекарств на основе ВВ: Использование биогенеза внеклеточных везикул, обнаруженного в слюнных железах H. nipponia (2025), в качестве природных нанопереносчиков для целенаправленной доставки терапевтических средств, производных от пиявки
- Альтернативные производственные платформы: Расширение рекомбинантного производства на основе микроводорослей (продемонстрированного для гирудина в C. reinhardtii, 2025) на другие белки СЖС, требующие посттрансляционных модификаций
СЖС Hirudo medicinalis представляет собой один из наиболее фармакологически богатых биологических секретов в животном мире. Его систематическая характеристика, далёкая от завершения, продолжает выявлять молекулы с потенциальными терапевтическими применениями, выходящими далеко за пределы антикоагуляции — как показывают пять крупных открытий только в 2025 году. ASH поддерживает продолжение инвестиций в исследования СЖС как основу доказательной практики и фармацевтических инноваций.
Ключевые исследования по характеристике СЖС
| Исследование | Дизайн | Популяция (n=) | Вмешательство | Ключевой исход | Результат |
|---|---|---|---|---|---|
| Haycraft JB 1884 | Biochemical characterization | Hirudo medicinalis SGS (n=NR) | Extraction and bioassay | Anticoagulant activity | First demonstration leech secretion prevents coagulation; identified unicellular glands. Proc R Soc Lond |
| Markwardt F 1957 | Biochemical characterization | Hirudo medicinalis SGS (n=NR) | Extraction and purification | Thrombin inhibition | First isolation of pure hirudin; thrombin-specific inhibition confirmed. Hoppe-Seyler Z Physiol Chem |
| Fritz H et al. 1969 | Biochemical characterization | Hirudo medicinalis SGS (n=NR) | Extraction and purification | Protease inhibition | Discovery of bdellin A (7 kDa) and B (5 kDa); trypsin/plasmin inhibition. Hoppe-Seyler Z Physiol Chem |
| Seemuller U et al. 1977 | Biochemical characterization | Hirudo medicinalis SGS (n=NR) | Extraction and purification | Neutrophil elastase / cathepsin G inhibition | Isolation of eglins b/c (8.1 kDa); neutrophil elastase and cathepsin G inhibition. Hoppe-Seyler Z Physiol Chem |
| Baskova IP & Nikonov GI 1985 | Biochemical characterization | Hirudo medicinalis SGS (n=NR) | Extraction and enzymatic assay | Fibrinolytic / isopeptidase activity | Discovery of destabilase isopeptidase — first enzyme cleaving ε-(γ-Glu)-Lys bonds in stabilized fibrin. Biokhimiya |
| Baskova IP et al. 1987 | In vitro / preclinical | Hirudo medicinalis SGS (n=NR) | Hirudin-depleted SGS fraction bioassay | Antiplatelet and intrinsic pathway inhibition | Hirudin-depleted SGS retains antiplatelet and intrinsic pathway inhibition — redundant anticoagulant mechanisms demonstrated. Biokhimiya |
| Rigbi M et al. 1987 | Biochemical characterization | Hirudo medicinalis SGS (n=NR) | Phagostimulation collection (arginine-based) | Eglin-like and anticoagulant activities | Developed arginine-based phagostimulation method; confirmed eglin-like and anticoagulant activities in collected secretion. Comp Biochem Physiol |
| Seymour JL et al. 1990 | Biochemical characterization | Macrobdella decora SGS (n=NR) | Extraction and purification | Platelet GP IIb/IIIa integrin antagonism | Discovery of decorsin (4.4 kDa, RGD motif) — platelet GP IIb/IIIa integrin antagonist. J Biol Chem |
| Munro R et al. 1991 | Biochemical characterization | Hirudo medicinalis SGS (n=NR) | Extraction and purification | Platelet adhesion inhibition | Characterization of calin (65 kDa) — collagen-mediated platelet adhesion inhibitor; key mechanism for prolonged post-bite bleeding. Blood Coagul Fibrinolysis |
| Baskova IP et al. 2001 | Biochemical characterization | Hirudo medicinalis SGS (n=NR) | Contamination-free phagostimulation collection | SGS composition during feeding | Contamination-free collection method developed; SGS composition varies during feeding — most potent peptides released in first minutes. Biochemistry (Moscow) |
| Zavalova LL et al. 2000 | Biochemical characterization | Hirudo medicinalis SGS (n=NR) | Recombinant expression and enzymatic assay | Dual isopeptidase / lysozyme activity | Destabilase exhibits both isopeptidase (thrombolytic) and lysozyme (antibacterial) activities in a single 12.3 kDa protein. Biochemistry (Moscow) |
| Kvist S et al. 2020 | Genome assembly | Hirudo medicinalis SGS (n=NR) | Whole-genome sequencing and annotation | Antihemostatic gene catalog | Draft genome assembly with annotation of multiple anticoagulation and antihemostatic protein genes. Sci Rep |
| Babenko VV et al. 2020 | Proteomics/transcriptomics | 3 Hirudo species SGS (n=NR) | Salivary cell RNA-seq | Novel secreted protein discovery | RNA-seq across 3 species; discovered M12/M13 proteases, CRISP proteins, apyrase, ADA, cystatins, and ficolins. BMC Genomics |
| Lukas P et al. 2022 | Biochemical characterization | Hirudinaria manillensis SGS (n=NR) | Recombinant expression and structural analysis | Hirudin superfamily structure | Tandem-Hirudin — a tandem two-domain member of the hirudin superfamily; no thrombin inhibition despite structural similarity. Parasitol Res |
| Kurdyumov AS et al. 2015 | In vitro / preclinical | Recombinant Hirudo medicinalis destabilase (n=NR) | Recombinant expression and enzymatic characterization | Isopeptidase / lysozyme activity | Characterization of recombinant destabilase-lysozyme isoforms retaining isopeptidase (thrombolytic) and antibacterial activities. BMC Biochem |
Пробелы в доказательной базе и приоритеты исследований
Несмотря на 141 год исследований, характеристика SGS остаётся неполной. Количество идентифицированных белков сейчас исчисляется сотнями (Babenko и др., 2020; Manuvera и др., 2025; Serebrennikova и др., 2025). Приоритетные направления исследований включают:
Функциональная характеристика
- Многие из 189 белков, идентифицированных методами протеомики в слюнном секрете H. medicinalis (Babenko et al., 2020), ожидают биохимической характеристики
- Белки CRISP, фиколины и протеазы M12/M13 имеют неизвестную терапевтическую значимость
- Функция тандем-гирудина (несмотря на гомологию с гирудином, но отсутствие тромбиновой активности) неизвестна
- Псевдогирудин (5 кДа, без антитромбиновой активности) — функция не определена с 1980 г.
Стандартизация и трансляция
- Сезонная вариабельность осложняет стандартизацию дозирования для клинического использования
- Межвидовые различия (H. medicinalis, H. verbana, H. orientalis) недостаточно охарактеризованы
- Нет валидированной панели анализов для контроля качества СЖС клинического уровня
- ИИ-управляемый дизайн лекарств на основе скаффолдов СЖС — теперь частично подтверждён открытием hirunipin-2 с помощью ИИ-биоинформатики (2025)
- Рекомбинантное производство в микроводорослях (гирудин в C. reinhardtii, 2025) требует масштабирования и валидации клинического уровня
- Биогенез внеклеточных везикул в клетках слюнных желёз H. nipponia описан морфологически (2025); их карго и любой потенциал доставки лекарств остаются непроверенными
Связанные исследования
Leech Salivary Proteome and Transcriptome: 434 Deduced Protein Sequences
Proteomic analysis of leech salivary glands combined with transcriptome data deduced 434 full-length protein sequences; 44 proteins and 221 transcripts of bioactive molecules were involved in leech sucking pathways. The abstract does not name the leech species.
Liu Z, Tong X, Su Y, et al. · Journal of Proteomics
Comparative Transcriptomics of Three Hirudo Species
RNA-seq of laser-microdissected salivary cells and muscle from three Hirudo species (H. medicinalis, H. orientalis, H. verbana), with proteomic validation of the salivary cell secretion and a draft H. medicinalis genome. Differential expression analysis found 102, 174 and 72 salivary-cell transcripts in the three species respectively, grouped into 25 orthologous clusters shared by all three species (44 shared by at least two). Proteomics identified 189 (H. medicinalis), 86 (H. orientalis) and 344 (H. verbana) proteins in the secretion, with 39 orthologous clusters shared by all three species. Well-known anticoagulants such as hirudin, bdellins, eglins, saratins and destabilases were not differentially expressed between salivary cells and muscle.
Babenko VV et al. · BMC Genomics
Детальные профили биоактивных макромолекул в секретах слюны пиявок, определённые путём объединения данных протеома и транскриптома слюнных желёз
Выполнен углублённый протеомный анализ слюнных желёз пиявок: из объединённых протеомных и транскриптомных данных выведено 434 полноразмерные последовательности белков. В механизмы кровососания вовлечены 44 белка и 221 транскрипт биоактивных молекул; две трети биоактивных генов играют ключевую роль в процессе укуса и связаны с обитанием в пещерах. По заключению авторов, эффективность лечения может различаться в зависимости от вида пиявок, а сочетание высокопроизводительной протеомики и транскриптомики эффективно для выявления белков низкой концентрации и создаёт основу для поиска новых фармакологических агентов и мишеней.
Liu Z, Tong X, Su Y et al. · Journal of proteomics
Методы протеомного анализа для характеристики белков секрета слюнных желёз медицинской пиявки в разные сезоны
Секрет слюнных желез медицинской пиявки Hirudo medicinalis летом и зимой изучен методами протеомного анализа. При одинаковом расположении фракций выявлены сезонные различия для белков 15–250 кДа при двумерном SDS-электрофорезе и 2–10 и 10–60 кДа при SELDI-MS. В высокомолекулярной фракции методом MALDI-TOF-MS детектировано 32 белка летом и 20 зимой (менее 20% общего белка); для 12 определены N-концевые последовательности, среди которых известных не выявлено. Данные позволяют предположить высокое содержание новых белков, что коррелирует с многочисленными положительными клиническими эффектами гирудотерапии, механизмы которых неясны.
Baskova IP et al. · Biochemistry. Biokhimiia
Белково-липидные частицы секрета слюнных желёз медицинской пиявки: их размер и морфология
Впервые показано взаимное расположение белков и липидов в частицах секрета слюнных желёз медицинской пиявки, описаны их размеры и морфология. По данным электронной (сканирующей и просвечивающей) и конфокальной микроскопии секрет состоит из частиц разного размера и формы. Неионные детергенты (Brij 35, Tween 20) диссоциировали белково-липидные частицы, повышая концентрацию свободного белка. Зонд перилен выявил липиды преимущественно внутри частиц; холестерин обнаружен на поверхностных срезах в структурах, напоминающих кавеолы. Замораживание при −70 °C превращало секрет в множество мелких однотипных частиц.
Baskova IP et al. · Biochemistry. Biokhimiia
Изменения протеома и транскриптома слюнных желёз пиявки Hirudo nipponia, вызванные голоданием
Транскриптом слюнных желёз пиявки Hirudo nipponia секвенировали (Illumina RNA-Seq) после 30 сут голодания и в накормленном состоянии: выявлено 2650 дифференциально экспрессируемых генов. Количественная протеомика без мечения позволила идентифицировать 2021 белок; 181 из них различались по экспрессии между состояниями — 72 повышены, 109 понижены. После 30 сут голодания железы продолжали синтезировать белковые активные вещества, адаптируясь ослаблением дыхательной активности и снижением метаболизма; энергия, образуемая гликолизом и циклом трикарбоновых кислот, шла на синтез таких веществ, как антибиотики.
Cai M, Shen H, Xing Y, Wang W, Guan F, Luo Y · PLoS one
Связанные ресурсы
Научный центр
Обзор среды исследований СЖС.
Гемостаз и коагуляция
Антикоагулянтные механизмы в деталях.
Ингибиторы протеиназ
14 охарактеризованных профилей ингибиторов.
Нейротрофические эффекты
Дестабилаза, бделлины и нейрорепарация.
Бивалирудин
От гирудина пиявки до одобренного FDA препарата.
Экстракты пиявки и Пиявит
Разработка пероральной фармацевтической формы.