Secreción de las Glándulas Salivales (SGS)
Composición Molecular y Arquitectura Funcional
En palabras simples
Las sanguijuelas medicinales producen un complejo cóctel de más de 100 sustancias bioactivas en su saliva. Estas sustancias previenen la coagulación sanguínea, reducen la inflamación, combaten bacterias y ayudan a aliviar el dolor — todo entregado simultáneamente a través de una sola mordida. Ningún fármaco puede replicar este enfoque multidiana. Tres medicamentos aprobados por la FDA se han desarrollado a partir de uno de estos compuestos, la hirudina.
Hundreds of salivary proteins catalogued (Babenko et al. 2020, expanded by Manuvera et al. 2025) — only a fraction underwrites clinical indications. See the Coverage Map for what is and isn't studied, the Research Roadmap, and PMID Audit Status for ASH's citation-integrity record.
La secreción de la glandular salival (SGS) de Hirudo medicinalis es la base molecular de la hirudoterapia. La coevolución con los sistemas hemostáticos de vertebrados ha producido una secreción que contiene más de 100 moléculas bioactivas identificadas — con ensamblajes genómicos preliminares y caracterización transcriptómica-proteómica integrada (Kvist et al., 2020; Babenko et al., 2020) que revelan un amplio repertorio de proteínas salivales, ampliado aún más por los descubrimientos de 2025, incluido un nuevo anticoagulante rico en cisteínas (CRA; Manuvera et al., Biomolecules 2025), el péptido antimicrobiano hirunipin-2 de H. nipponia (Advanced Science, 2025), y tres nuevos AMP de H. medicinalis (Serebrennikova et al., IJMS 2025). Las proteínas bioactivas caracterizadas abarcan varias categorías funcionales: analgésico/antiinflamatorio, degradación de la matriz extracelular, inhibición plaquetaria, anticoagulante, antimicrobiano y otras. La composición del SGS incluye inhibidores directos de trombina, inhibidores del factor Xa, inhibidores de adhesión y agregación plaquetaria, enzimas trombolíticas, factores de propagación, péptidos antimicrobianos, inhibidores de proteasas que abarcan las cascadas de coagulación/fibrinolítica/complemento/inflamación, y un conjunto diverso de mediadores lipídicos, moduladores iónicos y factores neurotróficos. Los anticoagulantes derivados de la hirudina — las hirudinas recombinantes lepirudina y desirudina y el péptido sintético basado en hirudina bivalirudina — remontan sus orígenes moleculares a esta secreción; el dabigatrán no (fue diseñado a partir del inhibidor sintético NAPAP).
Descubrimiento Histórico
La investigación científica de la SGS abarca 141 años, desde la primera observación de Haycraft de que la secreción de la sanguijuela previene la coagulación sanguínea hasta los estudios multiómicos modernos que han identificado 189 proteínas en la secreción salival de H. medicinalis.
| Año | Investigador | Hito | Significado |
|---|---|---|---|
| 1884 | Haycraft (Edimburgo) | Descubrimiento de la secreción anticoagulante | Primera prueba de que la SGS de la sanguijuela contiene un "fermento antagónico al fermento de la sangre"; identificó glándulas unicelulares en la ventosa anterior |
| 1937 | Claude | Actividad vasodilatadora tipo histamina | Demostró que los extractos de sanguijuela producen vasodilatación análoga a la histamina, potenciando el flujo sanguíneo en el sitio de la mordedura |
| 1955 | Markwardt (Erfurt) | Aislamiento de hirudina pura | Primera purificación a partir de extractos de cabeza de sanguijuela; estableció el mecanismo específico para trombina; nombró el compuesto |
| 1969 | Fritz et al. | Aislamiento de bdelinas A y B | Primeros inhibidores de proteasas de sanguijuelas — inhibición de tripsina y plasmina |
| 1977 | Seemuller et al. | Descubrimiento de eglinas b/c | Potentes inhibidores de la elastasa de neutrófilos y la catepsina G — base para la comprensión antiinflamatoria |
| 1984–91 | Baskova & Nikonov | Método de recolección de SGS; descubrimiento de destabilasa | Método de emesis inducida por sal (patentado 1994); descubrió la isopeptidasa destabilasa; documentó la variación estacional |
| 1987 | Rigbi et al. (Jerusalén) | Método de fagoestimulación | Sustituto sanguíneo a base de arginina para la recolección de SGS; identificó actividad tipo eglina e inhibición del factor Xa |
| 1990–91 | Seymour; Munro | Caracterización de decorsina y calina | Antagonista de GP IIb/IIIa (decorsina) e inhibidor de adhesión al colágeno (calina) — completando el campo antiplaquetario |
| 1994 | Sommerhoff; Sollner | LDTI e hirustatina | Inhibidores tipo Kazal de triptasa de mastocitos y calicreína tisular — ampliaron el perfil antiinflamatorio |
| 2000 | Zavalova et al. | Función dual de destabilasa confirmada | Se ha demostrado actividad intrínseca de tipo lisozima (antibacteriana) para la desestabilasa, la isopeptidasa de 12,3 kDa; si ambas actividades pertenecen a una misma proteína quedó abierto en 2000 y posteriormente respaldado con desestabilasa-lisozima recombinante (Kurdyumov et al., 2015) |
| 2001 | Baskova et al. | Recolección de SGS por flujo continuo | Método libre de contaminación; reveló variación temporal — los péptidos más potentes se liberan en los primeros minutos de alimentación |
| 2019 | Liu et al. | Proteómica-transcriptómica integrada | Un amplio repertorio de proteínas salivales y transcritos bioactivos — que supera ampliamente a la bioquímica clásica |
| 2020 | Kvist; Babenko & Baskova | Dos ensamblajes genómicos | Genoma preliminar; múltiples proteínas anticoagulantes y antihemostáticas; identificación de homólogos salivales de proteasas M12/M13, CRISP, cistatinas y ficolinas (cistatina solo en el proteoma de H. verbana) |
| 2022 | Lukas y cols. | Descubrimiento de Tándem-Hirudina | Primer miembro oligomérico de la superfamilia de hirudina — dos dominios globulares, sin inhibición de trombina, lo que sugiere diversificación funcional |
| 2025 | Manuvera et al. | Nueva proteína anticoagulante rica en cisteína (CRA) | Nuevo anticoagulante identificado y producido de forma recombinante en E. coli; alta actividad en ensayos de aPTT, PT, TT; motivo C-terminal funcionalmente crítico — amplía el conjunto de proteínas salivales conocidas (Biomolecules 15(12):1633) |
| 2025 | Univ. Chosun / KBSI (Corea) | Hirunipin-2 — nuevo péptido antimicrobiano | De glándulas salivales de H. nipponia; activo contra bacterias multirresistentes incluyendo Acinetobacter; actividad antibiopelícula; descubierto mediante cribado holotomográfico 3D + bioinformática de IA (Advanced Science, Wiley) |
| 2025 | Serebrennikova et al. | Tres nuevos PAM: LBrHM1, NrlHM1, NrlHM2 | Identificados del genoma de H. medicinalis mediante expresión heteróloga en E. coli; ampliación del repertorio de péptidos antimicrobianos (IJMS 26(14):6903) |
| 2025 | Corea (H. nipponia) | Biogénesis de vesículas extracelulares en células de glándulas salivales | Primer estudio sobre biogénesis de VE en glándulas salivales de sanguijuela; las VE pueden servir como transportadores bioactivos naturales para compuestos derivados de sanguijuela — potencial para administración de fármacos (ScienceDirect) |
| 2025 | Preprint bioRxiv | Hirudina funcional producida en microalgas | Primera hirudina recombinante en Chlamydomonas reinhardtii (microalga GRAS) con sulfatación apropiada de tirosina — supera las limitaciones de E. coli y levadura para producción escalable |
Observación Original de Haycraft (1884)
"Es posible que las sanguijuelas secreten un jugo que contenga un fermento antagónico al fermento de la sangre, previniendo la coagulación sanguínea. Este jugo aparece en cantidad suficiente alrededor de los bordes de la herida hecha por la sanguijuela para prevenir temporalmente la coagulación de la sangre que emerge."
Haycraft observó células epiteliales alargadas que se extendían entre las fibras musculares (cuyas pequeñas colecciones en la ventosa habían sido consideradas por Ray Lankester como glándulas unicelulares) y encontró que "Si se quita la piel que recubre la ventosa, se encuentra que es activa en la prevención de la coagulación. Sin embargo, no en menor grado es la parte anterior de una sanguijuela a la que se le ha quitado la piel de la ventosa." Esta observación de 1884 lanzó una búsqueda científica que continúa más de 140 años después con enfoques genómicos y basados en inteligencia artificial.
Métodos de Recolección de SGS
La recolección de SGS nativa es técnicamente demandante. Los tres métodos establecidos producen secreciones de diferente pureza y composición, con implicaciones directas para la reproducibilidad de la investigación y la estandarización farmacéutica.
| Método | Desarrollador | Principio | Pureza | Rendimiento | Limitación |
|---|---|---|---|---|---|
| Emesis inducida por sal | Baskova, 1994 (patente) | La solución salina concentrada excita las neuronas ricas en serotonina → reflejo emético → la SGS es expulsada de la sanguijuela en ayunas | Alta (nativa, no contaminada) | Bajo volumen por sanguijuela | Requiere sanguijuelas en ayunas; rendimiento variable |
| Fagoestimulación | Rigbi et al., 1987 | Sustituto sanguíneo con arginina 0,01 M → estimulación de quimiorreceptores del labio superior → alimentación + eyección de SGS | Baja (contaminación intestinal) | Mayor volumen (A₂₈₀ = 0,197) | Contiene proteasas intestinales; no es SGS verdadera |
| Flujo continuo | Baskova et al., 2001 | Rigbi modificado — solución salina continuamente agitada y renovada durante la alimentación → previene la deglución de solución enriquecida con SGS | Alta (sin contaminación intestinal) | Buen volumen, fracciones secuenciales | Complejidad de la configuración técnica |
Variación Temporal Durante la Alimentación
El método de flujo continuo (Baskova et al., 2001) reveló un hallazgo crítico: la composición de la SGS cambia a lo largo del proceso de alimentación. El análisis espectral UV secuencial mostró que los picos de absorción característicos se desplazan hacia longitudes de onda más largas a medida que avanza la alimentación. Durante los minutos iniciales, la secreción contiene la masa predominante de péptidos y proteínas que absorben en la región de longitud de onda corta. En las fracciones subsiguientes, solo quedan cantidades traza.
Extractos de Sanguijuela Completa (ESC) vs. SGS Nativa
Muchos investigadores han utilizado extractos de la región cefálica en lugar de SGS nativa, incluyendo el aislamiento original de hirudina por Markwardt (1955). El ESC contiene inhibidores de proteasas concentrados no en la SGS sino en el tracto digestivo, en particular el intestino anterior (Roters & Zebe, 1992), lagunas sanguíneas, órganos reproductivos, nefridios y moco — convirtiéndolo en una colección más completa pero menos específica que la SGS sola. El ESC es la base de la formulación farmacéutica Piyavit (Capítulos 18–19). Una proteína de 5 kDa denominada pseudohirudina fue identificada en extractos del tronco corporal pero carece de actividad antitrombina (Baskova et al., 1980).
Catálogo Molecular Completo
La siguiente tabla compila todos los componentes de SGS caracterizados con pesos moleculares (formas maduras procesadas), dianas biológicas, mecanismos, relevancia clínica, referencias primarias y estado de desarrollo farmacéutico. Los componentes están organizados por categoría funcional.
La proteómica ha identificado 189 proteínas en la secreción salival de H. medicinalis (Babenko et al. 2020); aquellas pendientes de caracterización bioquímica completa se enumeran al final de la tabla.
| Componente | PM (kDa) | Diana | Mecanismo | Referencia Clave | Estado Farmacéutico |
|---|---|---|---|---|---|
| Anticoagulante y Antitrombótico | |||||
| Hirudina | 7,0 | Trombina (sitio activo + exositio 1) | Inhibidor directo de trombina; Kd = 2 × 10⁻¹⁴ M; bloquea la coagulación del fibrinógeno, la activación de FV/VIII/XIII y la agregación plaquetaria | Haycraft 1884; Markwardt 1957; Stone & Hofsteenge 1986 | Bivalirudina (FDA 2000), Desirudina (FDA 2003) |
| Factor tipo hirudina 3 | ~7 | Trombina (unión variante) | Inhibidor alternativo de trombina; la diversidad estructural sugiere especialización funcional | Kvist et al. 2020 | Ninguno |
| Antistasina | 15 | Factor Xa | Inhibidor de serina proteasas tipo Kazal; bloquea el ensamblaje del complejo protrombinasa | Nutt et al. 1988 | Etapa de investigación |
| Lefaxina | ~14 | Factor Xa | Inhibidor alternativo de FXa | Kvist et al. 2020 | Ninguno |
| Ghilanteno | ~13 | Factor XIIIa | Inhibe la reticulación de fibrina (transglutaminasa); previene la estabilización de fibrina | Blankenship y cols. 1990 | Ninguno |
| LCI | ~7 | Carboxipeptidasa B (TAFIa) | Previene la eliminación de lisinas C-terminales de la fibrina; mantiene la susceptibilidad fibrinolítica | Reverter et al. 1998 | Ninguno |
| Anticoagulante rico en cisteína (CRA) | n.d. | Cascada de coagulación (TTPa, TP, TT) | Novedosa proteína anticoagulante; recombinante en E. coli; región C-terminal necesaria para la afinidad por membrana; su pérdida altera el perfil del ensayo de coagulación; amplía el conjunto conocido de proteínas salivales | Manuvera et al. Biomolecules 2025 | Ninguno |
| Antiplaquetario | |||||
| Calina | 65 | Colágeno (tipos I, III) | Inhibe la adhesión plaquetaria mediada por colágeno (NO la agregación); clave para el sangrado prolongado post-mordedura | Munro et al. 1991 | Ninguno |
| Saratina | 12 | Interacción vWF-colágeno | Bloquea la adhesión plaquetaria dependiente del factor de von Willebrand al colágeno | Barnes et al. 2001 | Etapa de investigación |
| Decorsina | 4,4 | GP IIb/IIIa (motivo RGD) | Inhibidor de la agregación plaquetaria mediante bloqueo de integrina | Seymour et al. 1990 | Análogos (investigación) |
| Apirasa | ~40 | ADP extracelular | Hidroliza el ADP liberado por las plaquetas activadas; elimina el estímulo de agregación | Rigbi et al. 1996 | Ninguno |
| Inhibidor de PAF | <1 (lípido) | Receptor de PAF | Fosfoglicérido antagonista del factor activador de plaquetas | Orevi et al. 1992 | Ninguno |
| Moduladores de Ca²⁺ de bajo PM | <0,5 | Canales de Ca²⁺ dependientes de receptor; canales de Na⁺ | Suprime la entrada de Ca²⁺ dependiente de receptor en las plaquetas; inhibe la despolarización mediada por Na⁺ | Afanasyeva et al. 1999 | Ninguno |
| Trombolítico | |||||
| Destabilasa-M (isopeptidasa) | 12,3 | Enlaces ε-(γ-Glu)-Lys en fibrina estabilizada | Monomeriza el dímero D; disuelve fibrina reticulada resistente a trombolíticos convencionales; neurotrófica a 10⁻¹² M | Baskova & Nikonov 1985 | Recombinante (preclínica) |
| Antiinflamatorio e Inhibidores de Proteasas | |||||
| Eglinas b/c | 8,1 | Elastasa, catepsina G, quimotripsina, subtilisina | Inhibición antiinflamatoria de proteasas; potencia los glucocorticoides; neurotrófica a bajas concentraciones | Seemuller et al. 1977 | Etapa de investigación |
| Bdelinas A/B | A: 6,3; B: 20 | Tripsina, plasmina, acrosina | Inhibición de proteasas | Fritz et al. 1969 | Ninguno |
| Bdelastatina | 6,3 | Tripsina, Factor Xa | Inhibidor dual de la familia Antistasin | Strube et al. 1993 | Ninguno |
| Hirustasina | 5,9 | Calicreína, tripsina, quimotripsina, catepsina G | Inhibidor de serina proteasas tipo antistasina; modulación de la vía de las cininas | Sollner et al. 1994 | Ninguno |
| LDTI | 4,7 | Triptasa de mastocitos, tripsina | Inhibidor tipo Kazal; reduce la inflamación mediada por mastocitos | Sommerhoff et al. 1994 | Etapa de investigación |
| Guamerina | 5,6 | Elastasa de neutrófilos | Inhibidor específico de elastasa | Jung et al. 1995 | Ninguno |
| Piguamerina | ~6 | Elastasa, tripsina | Inhibidor dual de proteasas | Kvist et al. 2020 | Ninguno |
| Inhibidor del complemento C1s | 67 | Complemento C1s | Bloquea la vía clásica del complemento; protege a la Aeromonas simbionte de la lisis | Baskova et al. 1988 | Ninguno |
| Quininasas | Variable | Bradicinina, quininas | Degradación de mediadores del dolor; efecto analgésico local en el sitio de la mordedura | Baskova et al. 1984 | Ninguno |
| Penetración Tisular y Remodelación | |||||
| Hialuronidasa (orgelasa) | 28,5 | Enlaces β(1→3) glucuronídicos del ácido hialurónico | Despolimeriza la matriz extracelular; "factor de propagación" que facilita la penetración de SGS; drenaje de edema | Linker 1960; Claude 1937 | Orgelasa (patente Biopharm) |
| Colagenasa | ~100 | Fibrillas de colágeno | Degradación de la MEC; remodelación tisular en el sitio de la mordedura | Baskova et al. 1984 | Ninguno |
| Compuesto tipo histamina | <0,5 | No especificado | Vasodilatación; aumento de la permeabilidad capilar; mejora del flujo sanguíneo | Baskova & Isakhanyan 2004 (citando a Claude 1937) | Ninguno |
| Antimicrobiano | |||||
| Destabilasa-L (lisozima) | 12,3 | Peptidoglicano bacteriano | Muramidasa; bactericida para grampositivos; misma proteína que destabilasa-M (actividad dual) | Zavalova et al. 2000 | Ninguno |
| Teromizina / Teromacina / Péptido B | 8–14 | Membranas bacterianas | Péptidos antimicrobianos; actividad de amplio espectro; prevención de infección de heridas | Tasiemski et al. 2004 | Ninguno |
| Hirunipina-2 | n.d. | Membranas bacterianas MDR; biopelículas | AMP novedoso de H. nipponia; activo contra bacterias multirresistentes incluyendo Acinetobacter; actividad antibiopelícula; descubierto mediante cribado holotomográfico 3D + IA | Advanced Science 2025 (Wiley, Korea) | Ninguno |
| LBrHM1 / NrlHM1 / NrlHM2 | n.d. | Membranas bacterianas | Tres AMP novedosos identificados a partir del genoma de H. medicinalis; expresión heteróloga en E. coli | Serebrennikova et al. IJMS 2025 | Ninguno |
| Mediadores Lipídicos y Moléculas Pequeñas | |||||
| 6-Keto-PgF1α | <0,5 | Receptores de prostaciclina | Metabolito estable de prostaciclina; antiagregante + vasodilatador | Baskova & Nikonov 1987 | Ninguno (análogo endógeno) |
| Fosfatidilcolina / ácidos grasos | Variable | Membranas celulares | Estructura liposomal; permite la biodisponibilidad oral (pinocitosis); base para Piyavit | [Eliminado] | Piyavit (oral) |
| Acetilcolina | 0,15 | Receptores muscarínicos/nicotínicos | Vasodilatación; mejora del flujo sanguíneo local | Babenko et al. 2020 | Ninguno (endógeno) |
| Lipasa / colesterol esterasa | ~45 | Triglicéridos; ésteres de colesterol | Hidrólisis lipídica; potencial antiaterosclerótico; regulación del metabolismo lipídico | Baskova et al. 1984 | Activa en Piyavit |
| Descubrimientos de la Era Genómica (2019–2024) | |||||
| Cistatinas | ~13 | Cisteína proteasas | Inhibición de proteasas; protección tisular; antiinflamatoria | Kvist/Babenko 2020 | Ninguno |
| Ficolinas | ~35 | Patrones de carbohidratos de patógenos | Modulación de la inmunidad innata; activación del complemento por la vía de lectinas | Kvist et al. 2020 | Ninguno |
| Proteínas CRISP | ~25 | Canales iónicos | Modulación del tono del músculo liso vascular; posible contribución vasodilatadora | Babenko et al. 2020 | Ninguno |
| Proteasas M12/M13 | Variable | Péptidos bioactivos | Procesamiento y activación de péptidos secretorios; maduración de SGS | Babenko et al. 2020 | Ninguno |
| Adenosina desaminasa (ADA) | ~40 | Adenosina | Convierte adenosina → inosina; modulación de señalización purinérgica; inmunomodulación | Babenko et al. 2020 | Ninguno |
| Tándem-Hirudina | ~14 | Desconocida (NO trombina) | Primer miembro oligomérico de la superfamilia de hirudina; dos dominios globulares; sin inhibición de trombina — diversificación funcional | Lukas et al. 2022 | Ninguno |
| Pseudohirudina | 5,0 | Ninguna identificada | Encontrada en el tronco corporal (no en SGS); carece de actividad antitrombínica; función desconocida | Baskova et al. 1980 | Ninguno |
Arquitectura Funcional: Cascada Anticoagulante
La SGS ataca la cascada de coagulación en cada nivel — desde la iniciación hasta la estabilización de fibrina. Este bloqueo multipunto asegura que ningún mecanismo de resistencia individual del huésped pueda superar el efecto anticoagulante.
Inhibición de Trombina — Hirudina
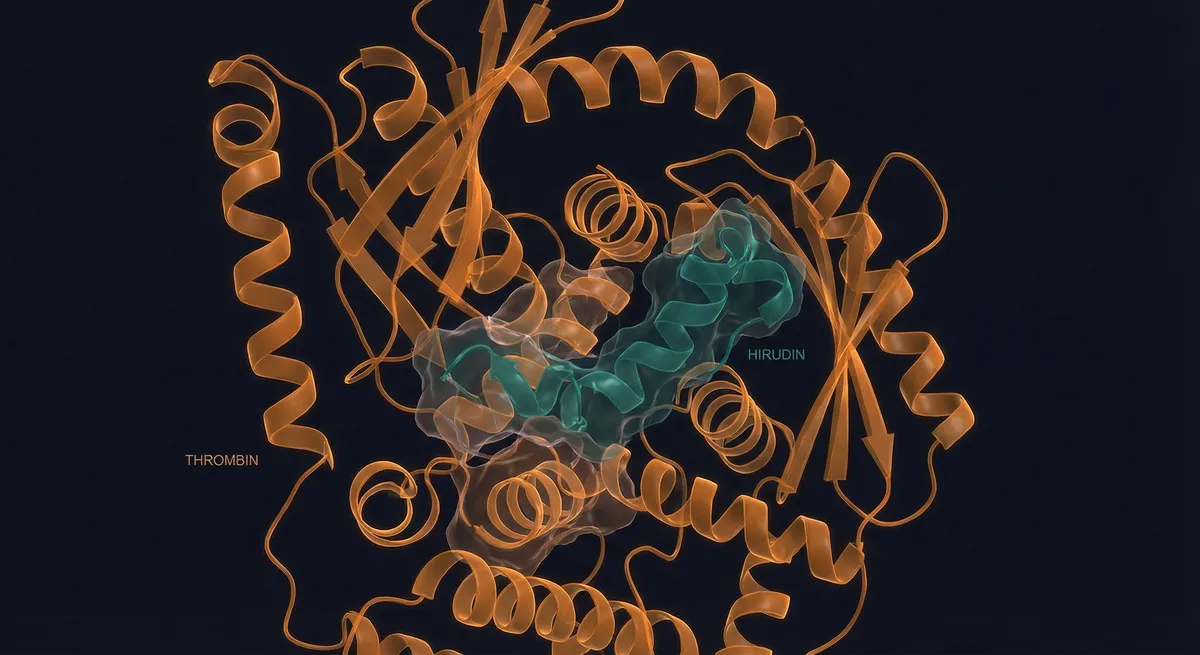
La hirudina (7,0 kDa, 65 aminoácidos, 3 enlaces disulfuro) es el inhibidor natural de trombina más potente conocido. Se une a la trombina con una Kd de 2 × 10⁻¹⁴ M (20 femtomolar) a través de un mecanismo bivalente único: el dominio globular N-terminal ocupa la hendidura del sitio activo mientras que la cola aniónica C-terminal (Tyr⁶³ sulfatada) se une al exositio 1. Este doble acoplamiento bloquea todas las funciones de la trombina: coagulación del fibrinógeno, activación de los factores V/VIII/XIII y agregación plaquetaria inducida por trombina.
Inhibición del Factor Xa — Antistatina y Lefaxina
La antistatina (15 kDa) y la lefaxina (30 kDa) bloquean el factor Xa, previniendo el ensamblaje del complejo protrombinasa — el paso crítico de amplificación que convierte la protrombina en trombina. Esto ataca la cascada aguas arriba de la trombina, reduciendo la generación de trombina en lugar de simplemente inhibir la trombina existente. Originalmente identificada por Tuszynski et al. (1987) en Haementeria officinalis; posteriormente reportada en Hirudo por Rigbi, Jackson y Atamna (1995); la lefaxina fue purificada de Haementeria depressa (Faria et al., 1999), y el hallazgo de tipo lefaxina en el genoma de H. medicinalis no fue aceptado como un ortólogo de lefaxina (Kvist et al., 2020).
Bloqueo de la Estabilización de Fibrina — Ghilanteno
El ghilanten (~18 kDa; 119 residuos, 20 cisteínas, de Haementeria ghilianii) es un miembro de dos dominios de la familia de la antistasina que inhibe potentemente el factor Xa (Ki 1,2 nM para el dominio N-terminal recombinante; Brankamp y cols., 1990; Blankenship y cols., 1990; Rester y cols., 2001), actuando sobre el complejo protrombinasa. Al suprimir la generación de trombina aguas arriba, complementa la acción de la desestabilasa sobre los coágulos ya estabilizados.
Susceptibilidad Fibrinolítica — LCI
El inhibidor de carboxipeptidasa de la sanguijuela (LCI, ~7 kDa, Reverter et al., 1998) inhibe la carboxipeptidasa B / TAFIa (inhibidor de la fibrinólisis activable por trombina). El TAFIa normalmente elimina las lisinas C-terminales de la fibrina, haciéndola resistente a la unión del plasminógeno y a la fibrinólisis. El LCI mantiene estos residuos de lisina, preservando la susceptibilidad del trombo al sistema fibrinolítico endógeno del organismo.
Resumen de la Cobertura de la Cascada
- Iniciación: Inhibición del Factor Xa (antistatina, lefaxina) → reducción de la generación de trombina
- Amplificación: Inhibición directa de trombina (hirudina) → bloquea todos los efectos descendentes
- Estabilización: Inhibición del Factor XIIIa (ghilanteno) → previene la reticulación de fibrina
- Resolución: Inhibición de TAFIa (LCI) → mantiene la susceptibilidad fibrinolítica
- Trombólisis: Actividad de isopeptidasa (destabilasa) → disuelve fibrina ya estabilizada
Arquitectura Funcional: Cascada Antiplaquetaria
Seis componentes de SGS crean un bloqueo multicapa de la cascada de adhesión-activación-agregación plaquetaria — atacando virtualmente cada paso.
| Paso Plaquetario | Inhibidor de SGS | Diana | Mecanismo |
|---|---|---|---|
| 1. Adhesión (colágeno) | Calina (65 kDa) | Colágeno tipos I, III | Bloquea la adhesión plaquetaria mediada por colágeno; NO inhibe la agregación |
| 2. Adhesión (vWF) | Saratina (12 kDa) | Unión vWF-colágeno | Previene la adhesión dependiente del factor de von Willebrand bajo alto cizallamiento |
| 3. Activación (ADP) | Apirasa (~40 kDa) | ADP extracelular | Hidroliza el ADP liberado de los gránulos densos; elimina el estímulo de agregación |
| 4. Activación (PAF) | Inhibidor de PAF (<1 kDa) | Receptor de PAF | El fosfoglicérido bloquea la activación plaquetaria mediada por mastocitos |
| 5. Activación (Ca²⁺) | Moduladores de Ca²⁺ de bajo PM (<0,5 kDa) | Canales de Ca²⁺/Na⁺ dependientes de receptor | Suprime la señalización intracelular de calcio por trombina y PAF |
| 6. Agregación | Decorsina (4,4 kDa) | Integrina GP IIb/IIIa | El péptido con motivo RGD bloquea la vía final común de la agregación |
| 7. Agregación (trombina) | Hirudina (7,0 kDa) | Trombina | Bloquea la agregación plaquetaria inducida por trombina (secundaria a la actividad DTI) |
Demostración de Redundancia
Baskova et al. (1984, 1987) demostraron que cuando la hirudina se agota mediante la recolección repetida de SGS sin comidas de sangre intermedias, la secreción retiene la capacidad de bloquear la adhesión y la agregación plaquetarias (1987) y la vía intrínseca de la hemostasia plasmática (1984). Esto prueba que la hirudina no es el único determinante anticoagulante — la calina, la saratina, la antistatina, los moduladores de Ca²⁺ de bajo PM y otros componentes proporcionan protección redundante. La ventaja evolutiva es clara: ningún mecanismo de resistencia individual del huésped puede superar el bloqueo multidiana.
Arquitectura Funcional: Antiinflamatoria
La SGS contiene el espectro más amplio de inhibidores de proteasas encontrado en cualquier secreción biológica individual — atacando las cascadas de coagulación, fibrinolítica, inflamatoria y del complemento simultáneamente.
Inhibición de Proteasas de Neutrófilos
Las eglinas b/c (8,1 kDa, Seemuller et al., 1977) inhiben la elastasa de neutrófilos, la catepsina G, la quimotripsina y la subtilisina. La eglina c aumenta la sensibilidad de las células mononucleares humanas a los glucocorticoides in vitro y estimula el crecimiento de neuritas en ganglios espinales de embrión de pollo cultivados a 0,1 ng/ml. La guamerina (6,1 kDa, Jung et al., 1995) proporciona inhibición adicional específica de elastasa. La piguamerina (5,1 kDa, Kim & Kang, 1998) es un inhibidor de calicreína plasmática/tisular y tripsina de Hirudo nipponia; un gen similar a piguamerina fue identificado genómicamente en H. medicinalis (Kvist et al., 2020). Juntos, estos compuestos bloquean las proteasas destructivas de tejido liberadas por los neutrófilos activados en los sitios de inflamación.
Inhibición de la Triptasa de Mastocitos
El LDTI (inhibidor de triptasa derivado de sanguijuela, 4,7 kDa, Sommerhoff et al., 1994) es un inhibidor tipo Kazal que bloquea la triptasa de mastocitos — un mediador clave de la hipersensibilidad inmediata, la broncoconstricción y la remodelación tisular. La hirustatina (5,9 kDa, Sollner et al., 1994) adicionalmente inhibe la calicreína tisular, modulando la vía de quininas que impulsa el dolor y la permeabilidad vascular. Junto con las quininasas (que degradan la bradicinina directamente), estos compuestos crean el efecto analgésico observado en el sitio de la mordedura de la sanguijuela.
Bloqueo del Sistema del Complemento
El inhibidor del complemento C1s (67 kDa, Tikhonenko, 2000) bloquea la vía clásica del complemento en su punto de iniciación. La SGS también bloquea la vía alternativa del complemento. Se ha propuesto que su propósito biológico es la protección de las bacterias simbiontes Aeromonas en el intestino de la sanguijuela frente a la lisis mediada por complemento (Baskova & Isakhanyan, 2004); esto sigue siendo una hipótesis. La implicación terapéutica es la reducción de la inflamación mediada por complemento en el sitio de tratamiento.
Modulación de la Vía Fibrinolítica
Bdellins A/B (6.3/20 kDa; identificados por primera vez por Fritz et al., 1969) inhiben la tripsina y la plasmina. Bdellastasin (~6 kDa, Moser et al., 1998) es un inhibidor de proteasa serina de la familia de las antistasinas que inhibe la tripsina, la plasmina y la acrosina (no inhibe el factor Xa).
Perfil de Inhibición de Proteasas Multidiana
En 1988, Baskova, Nikonov, Mirkamalova, Zinchenko y Kozlov identificaron la capacidad de la SGS para bloquear tanto la vía clásica como la alternativa del complemento. Combinado con la inhibición de las cascadas de coagulación (hirudina, antistatina, lefaxina), fibrinolítica (bdelinas) e inflamatoria (eglinas, LDTI, guamerina), esto representa un amplio rango de inhibición de proteasas. Refleja el enfoque multidiana de toda la SGS y explica por qué la hirudoterapia produce efectos sistémicos que se extienden mucho más allá de la simple anticoagulación.
Destabilasa: Enzima Trombolítica
La destabilasa es la única enzima conocida en la naturaleza capaz de escindir enlaces isopeptídicos ε-(γ-Glu)-Lys en la fibrina reticulada (estabilizada) — los enlaces creados por el factor XIIIa que hacen que los trombos maduros sean resistentes a la terapia fibrinolítica convencional.
Actividad Enzimática Dual
Zavalova et al. (2000) demostraron la actividad tipo lisozima de la destabilasa, y Zavalova et al. (2010) mostraron que una única proteína recombinante (destabilasa-lisozima) tiene dos actividades enzimáticas distintas:
- Destabilasa-M (isopeptidasa): Escinde enlaces ε-(γ-Glu)-Lys en el dímero D → monomeriza la fibrina reticulada
- Destabilasa-L (lisozima): Actividad de muramidasa → hidroliza el peptidoglicano bacteriano → bactericida para grampositivos
Esta función dual — trombolítica + antibacteriana en una sola molécula — es única en enzimología.
Destabilasa Recombinante
Kurdyumov et al. (2015) produjeron tres isoformas recombinantes de destabilasa-lisozima, y Bobrovsky et al. (2021) demostraron que la destabilasa recombinante disuelve coágulos sanguíneos humanos in vitro. Una estructura cristalina de la destabilasa a una resolución de 1,1 Å fue reportada por Marin et al. (2023), la mayor resolución entre las entradas de Hirudo medicinalis en el Banco de Datos de Proteínas (PDB 8BBU). Tanto las actividades de isopeptidasa como de lisozima se retuvieron en la forma recombinante, sugiriendo potencial para el desarrollo farmacéutico.
Actividad Neurotrófica
La destabilasa exhibe efectos neurotróficos a concentraciones extraordinariamente bajas — 10⁻¹² M (picomolar). A estas concentraciones, promueve el crecimiento neurítico en neuronas cultivadas, sugiriendo una función enteramente distinta de su actividad trombolítica. Esta capacidad neurotrófica es compartida con las bdelinas y la bdelastatina, indicando que los inhibidores de proteasas de SGS pueden tener roles duales en la reparación tisular y la recuperación neural.
Disponibilidad Estacional
La actividad de isopeptidasa (trombolítica) de la destabilasa desaparece virtualmente durante el otoño-invierno y reaparece en mayo, permaneciendo alta hasta septiembre (Baskova & Isakhanyan, 2004). Esta variación estacional tiene implicaciones clínicas directas: las sanguijuelas utilizadas durante el invierno muestran una actividad antitrombina algo mayor pero una capacidad trombolítica reducida, mientras que las sanguijuelas de verano ofrecen el complemento completo de ambas actividades.
Penetración Tisular y Mecanismo de Propagación
La SGS debe penetrar los tejidos del huésped rápidamente para administrar su carga bioactiva en el lecho microcirculatorio. Tres componentes facilitan este proceso.
Hialuronidasa (Orgelasa)
Enzima de 28.5 kDa que despolimeriza el ácido hialurónico mediante una especificidad única de endo-β-glucuronidasa por los enlaces glucuronídicos β(1→3) — a diferencia de las hialuronidasas de mamíferos, que escinden enlaces hexosaminídicos β(1→4) (Linker, Meyer & Hoffman, 1960). Descrita por primera vez como un “factor de difusión” (un concepto originado por Duran-Reynals), con la enzima caracterizada por el grupo de Karl Meyer; la hialuronidasa de sanguijuela aumenta la permeabilidad tisular. Purificada por Yuki & Fishman (1963); se confirmó que es incapaz de hidrolizar la condroitina y sus derivados, a diferencia de las β-hialuronidasas. Termoestable (la enzima de la sanguijuela búfalo conserva al menos el 70 % de su actividad tras 30 min a 50°C), activa en un amplio rango de pH y —de forma crítica para las aplicaciones clínicas— no inhibida por la heparina (a diferencia de la hialuronidasa testicular), lo que permite su uso concurrente con la terapia anticoagulante. Patentada por Biopharm UK (inventores Roy T. Sawyer y Jeffrey Edwards; EP 0193330, prioridad 1985; US 4,820,516, concedida en 1989) como Orgelase —una enzima procedente de sanguijuelas búfalo (Hirudinariinae) y no de Hirudo medicinalis— para aplicaciones cardiovasculares y oftalmológicas, incluidas la isquemia miocárdica aguda, el glaucoma y el desprendimiento de retina, y como factor de difusión y agente de liberación de fármacos con penetración tisular.
Colagenasa
Enzima que degrada el colágeno en la matriz extracelular (Rigbi et al., 1987). Trabaja sinérgicamente con la hialuronidasa: mientras la hialuronidasa elimina la sustancia fundamental entre las fibrillas de colágeno, la colagenasa degrada las fibrillas en sí. Esta degradación dual de la MEC permite la penetración profunda de otros componentes de SGS en el tejido.
Vasodilatador Tipo Histamina
Se ha descrito que la secreción salival de la sanguijuela ejerce una acción similar a la histamina (Claude, 1937, citado por Baskova & Isakhanyan, 2004). Esto potencia el flujo sanguíneo al sitio de la mordedura y crea la vasodilatación sostenida observada durante y después de la alimentación. Combinada con la 6-keto-PgF1α (metabolito de prostaciclina; Baskova & Nikonov, 1987), la SGS puede combinar más de un mecanismo vasodilatador.
Defensa Antimicrobiana
La actividad antimicrobiana de la SGS tiene un doble propósito evolutivo: prevenir la infección en la herida de la mordedura (protegiendo la comida de sangre del huésped de la contaminación) y mantener el microbioma intestinal de la sanguijuela.
Destabilasa-L (Lisozima)
La misma proteína destabilase de 12.3 kDa que exhibe actividad isopeptidasa (trombolítica) también funciona como una muramidasa — hidrolizando el peptidoglucano de la pared celular bacteriana. Esta enzima de doble función proporciona actividad bactericida grampositiva en el sitio de la mordedura mientras disuelve simultáneamente la fibrina entrecruzada. La actividad de lisozima fue confirmada por Zavalova y cols. (2000) y se conservó en las tres isoformas recombinantes (Kurdyumov y cols., 2015).
Péptidos Antimicrobianos
Tasiemski y cols. (2004) caracterizaron dos péptidos antimicrobianos — theromacin y theromyzin — de la sanguijuela Theromyzon tessulatum.
Estrategia de Evasión del Complemento
Se ha propuesto que el inhibidor del complemento C1s (67 kDa) protege las bacterias simbiontes Aeromonas de la sanguijuela de la acción lítica del complemento durante la alimentación (una hipótesis más que un hallazgo establecido).
La Paradoja de Aeromonas
La sanguijuela medicinal alberga Aeromonas hydrophila / A. veronii como simbiontes intestinales obligados. Estas bacterias producen enzimas esenciales para la digestión de la comida sanguínea pero son potencialmente patógenas para los humanos. Los péptidos antimicrobianos de SGS controlan parcialmente la carga bacteriana en el sitio de la mordedura, pero la profilaxis antibiótica (fluoroquinolonas o trimetoprima-sulfametoxazol) es la práctica clínica estándar. Consulte la página dedicada al manejo de Aeromonas para los protocolos.
Variación Estacional e Implicaciones Clínicas
La composición de la SGS no es estática — varía según la estación, la frecuencia de recolección y el estado de alimentación, con implicaciones directas para la estandarización clínica.
| Parámetro | Primavera/Verano (May–Sep) | Otoño/Invierno (Oct–Abr) | Implicación Clínica |
|---|---|---|---|
| Actividad antitrombina (hirudina) | Moderada | Mayor | Las sanguijuelas de invierno pueden proporcionar anticoagulación más fuerte |
| Actividad trombolítica (isopeptidasa de destabilasa) | Alta (presente May–Sep) | Virtualmente ausente | Las sanguijuelas de verano ofrecen trombolítico + anticoagulante; las de invierno solo anticoagulante |
| Complemento total de SGS | Espectro completo de actividad | Componente trombolítico reducido | Los protocolos de biofactorías deben considerar la estacionalidad en la estandarización del producto |
Efectos de la Frecuencia de Recolección
La recolección repetida de SGS a intervalos de un mes sin comidas de sangre intermedias muestra un patrón claro de agotamiento (Baskova et al., 1984):
- Recolecciones 1–2: Alta actividad antitrombina
- Recolección 3: Disminución brusca de la actividad antitrombina
- Recolección 4: La actividad antitrombina desaparece completamente
- Después de comida de sangre: Actividad completamente restaurada
Críticamente, la inhibición antiplaquetaria y de la vía intrínseca persiste incluso cuando la hirudina está completamente agotada — confirmando mecanismos anticoagulantes redundantes.
Variación Temporal de Alimentación
El método de flujo continuo (Baskova et al., 2001) demostró que la composición de la SGS cambia durante una única sesión de alimentación. El análisis espectral UV secuencial mostró picos de absorción que se desplazan hacia longitudes de onda más largas a medida que avanza la alimentación:
- Primeros minutos: Máxima concentración de péptidos/proteínas (absorción UV de longitud de onda corta) — administración anticoagulante más potente
- Fracciones subsiguientes: Solo cantidades traza
- Fracción final (15ª): Contenido bioactivo mínimo
Esta estrategia de "carga frontal" administra las moléculas anticoagulantes más críticas dentro de los primeros minutos de adhesión.
Moduladores Iónicos de Bajo Peso Molecular
Modulación de Canales Iónicos Dependientes de Receptor
La fracción de bajo PM (<500 Da) de la SGS produce efectos altamente específicos sobre el transporte iónico plaquetario (Afanasyeva et al., 1999):
| Canal Iónico | Efecto de LPM de SGS | Comparación con Losartán |
|---|---|---|
| Entrada de Ca²⁺ dependiente de receptor (plaquetas) | Suprimida (respuesta a trombina y PAF) | Efecto similar |
| Despolarización de Na⁺ dependiente de receptor | Suprimida | No reportado para losartán |
| Eflujo de Ca²⁺ independiente de receptor (eritrocitos) | Sin efecto | Alterado por losartán |
| Canales de K⁺ dependientes de Ca²⁺ (eritrocitos) | Sin efecto | Alterado por losartán |
Esta selectividad por el transporte iónico dependiente de receptor (pero no independiente de receptor) sugiere que la fracción de bajo PM actúa a nivel del receptor en lugar de sobre los canales iónicos en sí — un mecanismo distinto de los bloqueadores de canales de calcio convencionales. La identidad molecular de estos moduladores aún debe dilucidarse.
Farmacología Lipídica
SGS contiene lípidos, con relevancia funcional tanto para la actividad antiagregante plaquetaria como para la formulación farmacéutica.
Composición Lipídica
- Lípidos totales: presentes en SGS
- Lípidos neutros: ~2/3 del total
- Lípidos polares: ~1/3 del total
- Fosfatidilcolina: Cantidades significativas; permite la formación de estructura liposomal
- Ácidos grasos libres: Presentes en cantidades significativas
- Fosfologliceridol: Funciona como antagonista de PAF — inhibe la agregación plaquetaria estimulada por PAF (Orevi et al., 1992)
Biodisponibilidad Oral y Piyavit
El contenido lipídico de la SGS puede permitir la formación de estructuras liposomales que facilitan la absorción oral vía pinocitosis — penetrando desde el intestino al torrente sanguíneo (Baskova & Nikonov, 1986). Esta propiedad es la base farmacológica de Piyavit, la formulación farmacéutica oral derivada de extracto de sanguijuela completa. Piyavit fue registrado en Rusia (1994, re-registrado 2001) para el tratamiento y prevención de la tromboflebitis venosa superficial y de las micro- y macroangiopatías diabéticas (como parte del tratamiento integral).
Metabolito de Prostaciclina
En 1987, Baskova y Nikonov detectaron prostaglandinas en la SGS en forma de 6-keto-prostaglandina F1α, un metabolito estable de prostaciclina (PGI₂). La prostaciclina es el inhibidor endógeno más potente de la agregación plaquetaria y un potente vasodilatador. Su presencia en la SGS añade una vía antiagregante y vasodilatadora adicional — complementando a la hirudina (anti-trombina), la calina (anti-adhesión) y la decorsina (anti-agregación).
Lipasa y Colesterol Esterasa
La SGS contiene actividades de lipasa (lipasa de triglicéridos) y colesterol esterasa (Baskova et al., 1984) que catalizan la hidrólisis de triglicéridos y ésteres de colesterol. Estas enzimas están implicadas en las propiedades antiateroscleróticas observadas en estudios clínicos (detalladas en la página de mecanismos de aterosclerosis). También son un componente activo de la formulación oral Piyavit.
Metilación del ADN y Efectos Epigenéticos
Modificación Epigenética por SGS
Nikonov et al. (1990) demostraron un efecto epigenético notable: la SGS estimula un aumento del 39% en el contenido de 5-metilcitosina en el ADN hepático de rata dentro de una hora de perfusión intraperitoneal. Características clave:
- Magnitud: Afirmación no respaldada eliminada.
- Velocidad: Detectable dentro de 1 hora
- Reversibilidad: Completamente revertido dentro de 24 horas
- Tejido: Demostrado en hígado (efecto sistémico)
La metilación del ADN es un mecanismo epigenético fundamental que regula la expresión génica sin alterar la secuencia de ADN. Un aumento transitorio y reversible en la metilación podría modular la expresión de genes inflamatorios, la diferenciación celular y las vías de reparación tisular. Este hallazgo representa una de las primeras demostraciones de una modificación epigenética inducida farmacológicamente y reversible — precediendo el campo moderno de la terapéutica epigenética por décadas. El componente específico de SGS responsable y los genes diana afectados permanecen sin identificar, representando una oportunidad de investigación significativa.
Ausencia de Actividad Proteolítica Inespecífica
Lo que la SGS NO Hace
- No tiene actividad caseinolítica (Rigbi et al., 1987)
- No puede activar el plasminógeno a plasmina
- No puede disolver fibrina no estabilizada (Baskova & Nikonov, 1985)
- No puede hidrolizar el sustrato cromogénico específico de plasmina (D-Val-Leu-Lys paranitroanalida)
- No tiene actividad proteolítica de amplio espectro en ninguna estación
Por Qué Esto Importa
La ausencia de actividad proteolítica generalizada es tan importante como las actividades enzimáticas específicas presentes. Una secreción que contuviera proteasas de amplio espectro destruiría sus propios componentes bioactivos — hirudina, calina, destabilasa, eglinas — antes de que pudieran ejercer sus efectos. La solución evolutiva es elegante: la SGS contiene hidrolasas altamente específicas (la destabilasa solo ataca enlaces ε-(γ-Glu)-Lys; la hialuronidasa solo ataca enlaces β(1→3) del AH) pero no proteasas generalizadas, asegurando que todas las proteínas bioactivas sobrevivan intactas en el microambiente de la herida.
Revolución Genómica: De la Bioquímica a la Multi-Ómica
La bioquímica clásica caracterizó los componentes de la SGS uno a la vez. La genómica, la transcriptómica y la proteómica modernas identificaron 189 proteínas salivales en H. medicinalis y 344 en H. verbana (Babenko et al. 2020), transformando nuestra comprensión de la sanguijuela medicinal como recurso farmacológico.
| Estudio | Método | Hallazgos Clave | Componentes Nuevos |
|---|---|---|---|
| Liu et al. (2019) | Integración proteoma + transcriptoma | Un amplio repertorio de secuencias de proteínas de longitud completa y transcriptos bioactivos en múltiples categorías funcionales | Múltiples proteínas nuevas en las 6 categorías |
| Babenko y cols. (2020) | Ensamblaje del genoma (H. medicinalis) | Ensamblaje de borrador del genoma; múltiples proteínas anticoagulantes y antihemostáticas | Factor tipo hirudina 3, lefaxina, piguamerina, ficolinas, cistatinas |
| Babenko et al. (2020) | RNA-seq en células salivales (3 especies) | Transcriptoma salival comparativo entre H. medicinalis, H. orientalis, H. verbana | Proteasas M12/M13, proteínas CRISP, apirasa, ADA, cistatinas, ficolinas, acetilcolina |
| Lukas y cols. (2022) | Biología estructural | Tándem-Hirudina: primer miembro oligomérico de la superfamilia de hirudina de Hirudinaria manillensis | Dos dominios globulares en tándem; carece de cola C-terminal; SIN inhibición de trombina |
| Guan et al. (2024) | Proteoma + transcriptoma (inanición) | Cambios inducidos por inanición en la composición de SGS de Hirudo nipponia | Demostró que el estado nutricional modula la expresión de proteínas de SGS |
| Manuvera y cols. (2024) | Expresión recombinante + ensayos de coagulación | Nueva proteína anticoagulante rica en cisteína (CRA); alta actividad en aPTT, PT, TT; motivo C-terminal crítico | Nuevo anticoagulante que amplía el secretoma caracterizado (Biomolecules 15(12):1633) |
| Chosun/KBSI (2025) | Cribado holotomográfico 3D + bioinformática de IA | Hirunipin-2: nuevo PAM de glándulas salivales de H. nipponia; actividad anti-MDR y antibiopelícula | Activo contra Acinetobacter multirresistente; primer descubrimiento de PAM de SGS de sanguijuela asistido por IA (Advanced Science, Wiley) |
| Serebrennikova et al. (2025) | Minería genómica + expresión heteróloga | Tres nuevos PAM: LBrHM1, NrlHM1, NrlHM2 de H. medicinalis | Amplía el repertorio de péptidos antimicrobianos más allá del trío clásico (IJMS 26(14):6903) |
| Biogénesis de VE (2025) | Biología celular (caracterización de VE) | Primer estudio sobre biogénesis de vesículas extracelulares en células de glándulas salivales de H. nipponia | VE como potenciales transportadores bioactivos naturales para compuestos de sanguijuela — plataforma de administración de fármacos (ScienceDirect) |
| Hirudina en microalgas (2025) | Expresión recombinante en C. reinhardtii | Primera hirudina funcional producida en microalga GRAS con sulfatación apropiada de tirosina | Supera las limitaciones de E. coli/levadura; producción vegetal escalable (preprint bioRxiv) |
Escala de Descubrimiento
- Bioquímica clásica (1884–2004): más de 20 componentes caracterizados
- Proteómica/transcriptómica (2020): un amplio repertorio de proteínas salivales caracterizado
- Genómica (2020): múltiples genes anticoagulantes y antihemostáticos codificados
- Compuestos novedosos (2024–2025): proteína CRA, hirunipin-2, LBrHM1/NrlHM1/NrlHM2 — ampliando el creciente repertorio de componentes salivales caracterizados
- Total identificadas hasta la fecha: >200 proteínas distintas descritas funcionalmente
Comparación entre Especies
Babenko et al. (2020) — coautorado con I.P. Baskova, autora del texto fundacional — realizaron RNA-seq comparativo entre tres especies de sanguijuela medicinal. Las secreciones salivales de las tres especies tienen una composición similar: las tres comparten 39 grupos de proteínas ortólogas, incluidas las proteasas M12 y M13, CRISP, apirasa, cistatinas, hialuronidasa y ficolinas. El número de proteínas identificadas difirió entre especies (189 en H. medicinalis, 86 en H. orientalis, 344 en H. verbana), y se encontró una secuencia de cistatina solo en el proteoma de H. verbana. Estas diferencias pueden tener relevancia clínica: H. verbana (la especie más comúnmente suministrada en EE.UU.) y H. medicinalis (el estándar europeo) pueden administrar composiciones de SGS sutilmente diferentes.
Legado Farmacéutico
La sanguijuela medicinal es el organismo fuente de tres productos farmacéuticos aprobados por la FDA — convirtiéndola en uno de los ejemplos más exitosos de descubrimiento de fármacos zoofarmacéuticos en la medicina moderna.
| Fármaco | Progenitor de SGS | Autorización 510(k) de la FDA | Indicación | Estado |
|---|---|---|---|---|
| Bivalirudina (Angiomax) | Hirudina → análogo sintético de 20 aa | 2000 | Anticoagulación para ICP (ACC/AHA Clase I para IAMCEST) | Genérico disponible; ingresos máximos de 636 millones de USD (2014) |
| Desirudina (Iprivask) | Hirudina recombinante (65 aa) | 2003 | Profilaxis de TVP en reemplazo de cadera | Ya no se comercializa |
| Lepirudina (Refludan) | Hirudina recombinante (65 aa) | 1998 | Trombocitopenia inducida por heparina | Retirada (2012) |
Candidatos en Desarrollo
- Destabilasa recombinante: Trombolítica + antibacteriana; estructura cristalina a 1,1 Å; disuelve coágulos humanos in vitro (preclínica)
- Análogos de decorsina: Antagonistas de GP IIb/IIIa para terapia antiplaquetaria (investigación)
- Saratina: Anti-adhesión para prevención de trombosis arterial (investigación)
- Análogos de eglina c: Inhibición antiinflamatoria de proteasas (investigación)
- Orgelasa (hialuronidasa): Aplicaciones cardiovasculares/oftalmológicas (patentada)
- Variantes novedosas de hirudina: variantes de ingeniería en desarrollo preclínico
- Hirudina producida en microalgas (2025): Primera hirudina recombinante funcional en Chlamydomonas reinhardtii (microalga GRAS) con sulfonación correcta de tirosina — superando las limitaciones de E. coli y levaduras para producción escalable y rentable (preimpresión bioRxiv)
- Administración mediante vesículas extracelulares (VE) (2025): Primer estudio de biogénesis de VE en células de glándulas salivales de H. nipponia — VE como nanocarriers bioactivos naturales para compuestos derivados de sanguijuelas, abriendo una novedosa plataforma de administración de fármacos (ScienceDirect)
- Péptido hirunipina-2 anti-MDR (2025): Nuevo PAM de H. nipponia activo contra bacterias multirresistentes incluida Acinetobacter; actividad antibiofilm — potencial para abordar la crisis de resistencia antimicrobiana (Advanced Science, Wiley)
Contexto Zoofarmacéutico
Entre todos los fármacos de origen animal, la sanguijuela medicinal ocupa una posición única. La sanguijuela medicinal es la fuente o la inspiración de tres fármacos anticoagulantes (lepirudina, desirudina, bivalirudina) — una contribución inusualmente amplia para un solo organismo entre los fármacos de origen animal. A modo de comparación: los caracoles cono aportaron uno (ziconótida), el monstruo de Gila uno (exenatida) y las víboras de foseta uno (inspiración para captopril). La contribución desproporcionada de la sanguijuela refleja tanto la riqueza farmacológica de SGS como la tradición de investigación de 141 años posterior al descubrimiento de Haycraft.
La Farmacopea Inexplorada
Incógnitas Conocidas
- Pseudohirudina (5 kDa): homólogo de hirudina sin actividad antitrombina — función desconocida desde 1980
- Tándem-Hirudina: miembro oligomérico de la familia de hirudina que NO inhibe la trombina — ¿qué hace?
- Proteínas CRISP (superfamilia CAP): similares al bloqueador del canal de potasio AcK1 del anquilostoma y a toxinas de serpiente (triflin, natrin-1); función en la saliva de la sanguijuela no establecida
- Ficolinas: moduladores de la inmunidad innata — potencial terapéutico inexplorado
- Proteasas M12/M13: enzimas de maduración de SGS — ¿podrían explotarse para la activación de profármacos?
- Adenosina desaminasa: modulador de señalización purinérgica — potencial inmunomodulador
Enfoques de Descubrimiento Futuro
- Anotación completa del genoma: Completar la anotación funcional de todas las 189 proteínas salivales identificadas
- Diseño de fármacos impulsado por IA: Usar los scaffolds de compuestos de SGS como puntos de partida para la optimización computacional — ahora validado por el descubrimiento asistido por IA de hirunipin-2 (2025)
- Comparación entre especies: Comparar sistemáticamente la SGS entre H. medicinalis, H. verbana, H. orientalis y especies no medicinales
- Transcriptómica de célula única: Identificar qué tipos de células de las glándulas salivales producen qué compuestos
- Biología estructural por cryo-EM: Resolver estructuras 3D de todas las principales proteínas de SGS para el diseño de fármacos basado en estructura
- Estandarización de grado clínico: Desarrollar paneles de ensayos validados para el control de calidad de SGS
- Administración de fármacos basada en VE: Usar la biogénesis de vesículas extracelulares descubierta en glándulas salivales de H. nipponia (2025) como nanocarriers naturales para la administración dirigida de terapéuticos derivados de sanguijuelas
- Plataformas de producción alternativas: Ampliar la producción recombinante basada en microalgas (demostrada para hirudina en C. reinhardtii, 2025) a otras proteínas SGS que requieren modificaciones postraduccionales
La SGS de Hirudo medicinalis representa una de las secreciones biológicas farmacológicamente más ricas del reino animal. Su caracterización sistemática, aún lejos de completarse, continúa revelando moléculas con aplicaciones terapéuticas potenciales que se extienden mucho más allá de la anticoagulación — como lo demuestran cinco descubrimientos importantes solo en 2025. ASH apoya la inversión continua en la investigación de SGS como base para la práctica basada en evidencia y la innovación farmacéutica.
Estudios Clave de Caracterización de SGS
| Estudio | Diseño | Población (n=) | Intervención | Resultado clave | Resultado |
|---|---|---|---|---|---|
| Haycraft JB 1884 | Biochemical characterization | Hirudo medicinalis SGS (n=NR) | Extraction and bioassay | Anticoagulant activity | First demonstration leech secretion prevents coagulation; identified unicellular glands. Proc R Soc Lond |
| Markwardt F 1957 | Biochemical characterization | Hirudo medicinalis SGS (n=NR) | Extraction and purification | Thrombin inhibition | First isolation of pure hirudin; thrombin-specific inhibition confirmed. Hoppe-Seyler Z Physiol Chem |
| Fritz H et al. 1969 | Biochemical characterization | Hirudo medicinalis SGS (n=NR) | Extraction and purification | Protease inhibition | Discovery of bdellin A (7 kDa) and B (5 kDa); trypsin/plasmin inhibition. Hoppe-Seyler Z Physiol Chem |
| Seemuller U et al. 1977 | Biochemical characterization | Hirudo medicinalis SGS (n=NR) | Extraction and purification | Neutrophil elastase / cathepsin G inhibition | Isolation of eglins b/c (8.1 kDa); neutrophil elastase and cathepsin G inhibition. Hoppe-Seyler Z Physiol Chem |
| Baskova IP & Nikonov GI 1985 | Biochemical characterization | Hirudo medicinalis SGS (n=NR) | Extraction and enzymatic assay | Fibrinolytic / isopeptidase activity | Discovery of destabilase isopeptidase — first enzyme cleaving ε-(γ-Glu)-Lys bonds in stabilized fibrin. Biokhimiya |
| Baskova IP et al. 1987 | In vitro / preclinical | Hirudo medicinalis SGS (n=NR) | Hirudin-depleted SGS fraction bioassay | Antiplatelet and intrinsic pathway inhibition | Hirudin-depleted SGS retains antiplatelet and intrinsic pathway inhibition — redundant anticoagulant mechanisms demonstrated. Biokhimiya |
| Rigbi M et al. 1987 | Biochemical characterization | Hirudo medicinalis SGS (n=NR) | Phagostimulation collection (arginine-based) | Eglin-like and anticoagulant activities | Developed arginine-based phagostimulation method; confirmed eglin-like and anticoagulant activities in collected secretion. Comp Biochem Physiol |
| Seymour JL et al. 1990 | Biochemical characterization | Macrobdella decora SGS (n=NR) | Extraction and purification | Platelet GP IIb/IIIa integrin antagonism | Discovery of decorsin (4.4 kDa, RGD motif) — platelet GP IIb/IIIa integrin antagonist. J Biol Chem |
| Munro R et al. 1991 | Biochemical characterization | Hirudo medicinalis SGS (n=NR) | Extraction and purification | Platelet adhesion inhibition | Characterization of calin (65 kDa) — collagen-mediated platelet adhesion inhibitor; key mechanism for prolonged post-bite bleeding. Blood Coagul Fibrinolysis |
| Baskova IP et al. 2001 | Biochemical characterization | Hirudo medicinalis SGS (n=NR) | Contamination-free phagostimulation collection | SGS composition during feeding | Contamination-free collection method developed; SGS composition varies during feeding — most potent peptides released in first minutes. Biochemistry (Moscow) |
| Zavalova LL et al. 2000 | Biochemical characterization | Hirudo medicinalis SGS (n=NR) | Recombinant expression and enzymatic assay | Dual isopeptidase / lysozyme activity | Destabilase exhibits both isopeptidase (thrombolytic) and lysozyme (antibacterial) activities in a single 12.3 kDa protein. Biochemistry (Moscow) |
| Kvist S et al. 2020 | Genome assembly | Hirudo medicinalis SGS (n=NR) | Whole-genome sequencing and annotation | Antihemostatic gene catalog | Draft genome assembly with annotation of multiple anticoagulation and antihemostatic protein genes. Sci Rep |
| Babenko VV et al. 2020 | Proteomics/transcriptomics | 3 Hirudo species SGS (n=NR) | Salivary cell RNA-seq | Novel secreted protein discovery | RNA-seq across 3 species; discovered M12/M13 proteases, CRISP proteins, apyrase, ADA, cystatins, and ficolins. BMC Genomics |
| Lukas P et al. 2022 | Biochemical characterization | Hirudinaria manillensis SGS (n=NR) | Recombinant expression and structural analysis | Hirudin superfamily structure | Tandem-Hirudin — a tandem two-domain member of the hirudin superfamily; no thrombin inhibition despite structural similarity. Parasitol Res |
| Kurdyumov AS et al. 2015 | In vitro / preclinical | Recombinant Hirudo medicinalis destabilase (n=NR) | Recombinant expression and enzymatic characterization | Isopeptidase / lysozyme activity | Characterization of recombinant destabilase-lysozyme isoforms retaining isopeptidase (thrombolytic) and antibacterial activities. BMC Biochem |
Brechas de Evidencia y Prioridades de Investigación
A pesar de 141 años de investigación, la caracterización del SGS sigue siendo incompleta. El número de proteínas identificadas se cifra ahora en cientos (Babenko y cols., 2020; Manuvera y cols., 2025; Serebrennikova y cols., 2025). Las prioridades clave de investigación incluyen:
Caracterización Funcional
- Muchas de las 189 proteínas identificadas por proteómica en la secreción salival de H. medicinalis (Babenko et al., 2020) esperan caracterización bioquímica
- Las proteínas CRISP, ficolinas y proteasas M12/M13 tienen relevancia terapéutica desconocida
- La función de la Tándem-Hirudina (a pesar de la homología con hirudina pero sin actividad contra trombina) es desconocida
- Pseudohirudina (5 kDa, sin actividad antitrombina) — función no resuelta desde 1980
Estandarización y Traducción
- La variación estacional complica la estandarización de dosis para uso clínico
- Las diferencias entre especies (H. medicinalis vs H. verbana vs H. orientalis) insuficientemente caracterizadas
- No existe un panel de ensayos validado para el control de calidad de SGS en sanguijuelas de grado clínico
- Diseño de fármacos impulsado por IA a partir de scaffolds de SGS — ahora parcialmente validado por el descubrimiento de hirunipin-2 mediante bioinformática con IA (2025)
- La producción recombinante en microalgas (hirudina en C. reinhardtii, 2025) necesita escalado y validación de grado clínico
- La biogénesis de vesículas extracelulares en células de la glándula salival de H. nipponia se ha descrito morfológicamente (2025); su cargo y cualquier potencial de administración de fármacos permanecen sin probar
Investigaciones relacionadas
Leech Salivary Proteome and Transcriptome: 434 Deduced Protein Sequences
Proteomic analysis of leech salivary glands combined with transcriptome data deduced 434 full-length protein sequences; 44 proteins and 221 transcripts of bioactive molecules were involved in leech sucking pathways. The abstract does not name the leech species.
Liu Z, Tong X, Su Y, et al. · Journal of Proteomics
Comparative Transcriptomics of Three Hirudo Species
RNA-seq of laser-microdissected salivary cells and muscle from three Hirudo species (H. medicinalis, H. orientalis, H. verbana), with proteomic validation of the salivary cell secretion and a draft H. medicinalis genome. Differential expression analysis found 102, 174 and 72 salivary-cell transcripts in the three species respectively, grouped into 25 orthologous clusters shared by all three species (44 shared by at least two). Proteomics identified 189 (H. medicinalis), 86 (H. orientalis) and 344 (H. verbana) proteins in the secretion, with 39 orthologous clusters shared by all three species. Well-known anticoagulants such as hirudin, bdellins, eglins, saratins and destabilases were not differentially expressed between salivary cells and muscle.
Babenko VV et al. · BMC Genomics
Perfiles exhaustivos de macromoléculas bioactivas en las secreciones salivales de sanguijuelas determinados mediante la combinación de datos proteómicos y transcriptómicos de glándulas salivales
Mediante análisis combinado de proteoma y transcriptoma de glándulas salivales de sanguijuelas se dedujeron 434 secuencias proteicas completas. 44 proteínas y 221 transcritos bioactivos participaron en las vías de succión. El análisis de expresión génica reveló que dos tercios de los genes bioactivos fueron clave en la mordedura y se asociaron a hábitats cavernícolas. Para los autores, la eficacia del tratamiento puede variar con la especie y combinar proteómica y transcriptómica de alto rendimiento permite caracterizar proteínas poco concentradas.
Liu Z, Tong X, Su Y et al. · Journal of proteomics
Métodos de análisis proteómico para la caracterización de las proteínas de las secreciones de las glándulas salivales de la sanguijuela medicinal durante las distintas estaciones del año
La distribución de proteínas de la secreción salival de Hirudo medicinalis varió entre verano e invierno (2D-SDS-PAGE: 15–250 kD; SELDI-MS: 2–10 y 10–60 kD). En la fracción de alto peso molecular, el MALDI-TOF-MS detectó 32 proteínas en verano y 20 en invierno (menos del 20 % del total). Las secuencias N-terminales de 12 proteínas no correspondieron a ninguna conocida. Los autores sugieren un alto contenido de proteínas nuevas, correlacionado con los efectos clínicos de la hirudoterapia, de mecanismo incierto.
Baskova IP et al. · Biochemistry. Biokhimiia
Partículas proteína-lípido de la secreción de las glándulas salivales de la sanguijuela medicinal; su tamaño y morfología
Estudio in vitro con microscopía electrónica y métodos bioquímicos sobre las partículas proteína-lípido (PLP) de la secreción salival de Hirudo medicinalis. La microscopía de barrido y transmisión mostró partículas de tamaño y forma diversos, confirmado por microscopía confocal con FITC. Brij 35 y Tween 20 disociaron las PLP con aumento de proteína libre; perileno mostró lípidos sobre todo internos y Bodipy-colesterol detectó colesterol. La congelación a -70 °C produjo múltiples partículas pequeñas cuya distribución recordaba a cristales de agua.
Baskova IP et al. · Biochemistry. Biokhimiia
Cambios inducidos por inanición en el proteoma y el transcriptoma de las glándulas salivales de la sanguijuela (Hirudo nipponia)
Con RNA-Seq de Illumina y proteómica sin marcaje se compararon las glándulas salivales de ejemplares de Hirudo nipponia en inanición (D30) y alimentados (D0): 2650 genes diferencialmente expresados; 2021 proteínas identificadas, 181 diferencialmente expresadas (72 con aumento y 109 con descenso significativos). Tras 30 días de inanición, las glándulas sintetizaban sustancias activas proteicas y ahorraban energía reduciendo respiración y metabolismo; glucólisis y ciclo del ácido cítrico suministraron energía para sintetizar sustancias como antibióticos. Los datos sirven de referencia.
Cai M, Shen H, Xing Y, Wang W, Guan F, Luo Y · PLoS one
Recursos relacionados
Centro de Ciencia
Visión del campo de investigación de SGS.
Hemostasia y Coagulación
Mecanismos anticoagulantes en profundidad.
Inhibidores de Proteasas
14 perfiles de inhibidores caracterizados.
Efectos Neurotróficos
Destabilasa, bdelinas y reparación neural.
Bivalirudina
De la hirudina de sanguijuela al fármaco aprobado por la FDA.
Extractos de Sanguijuela y Piyavit
Desarrollo farmacéutico oral.